一株蝉花虫草菌重寄生真菌的分离鉴定*
张胜利1 ,蒲顺昌1 ,栾丰刚2 ,李增智3**
( 1.亳州学院生物工程研究所,亳州236800; 2.江西农业大学林学院,南昌330045; 3.安徽农业大学微生物防治省重点实验室,合肥230036)
摘 要:报道了1种新的昆虫-昆虫病原菌-重寄生菌三级营养关系,其中蝉若虫被昆虫病原真菌蝉花 Cordyceps chanhua感染,而蝉花又被重寄生真菌寄生。经形态学观察和分子生物学鉴定该重寄生真菌为寄生凹孢Syspastospora parasitica。柯赫氏法则验证结果表明:该重寄生真菌可以重寄生于蝉花Cordyceps chan hua、细脚棒束孢Isaria tenuipes以及球孢白僵菌Beauveria bassiana等虫草科真菌,寄主范围广泛。
关键词:寄生凹孢;蝉花;重寄生
中图分类号: Q94932
文献标志码: A
文章编号: 1672-3538( 2021) 01-0029-07
DOI: 10.13341 / j.jfr.2021.1209
引文格式:张胜利,蒲顺昌,栾丰刚,等.一株蝉花虫草菌重寄生真菌的分离鉴定[J].菌物研究,2021,19( 1) : 29-35.
Identification of a Mycoparasite Isolated from Cordyceps chanhua
ZHANG Shengli1,PU Shunchang1,LUAN Fenggang2,LI Zengzhi3!!
( 1. Institute of Biological Engineering,Bozhou College,Bozhou 236800,China; 2. College of For estry,Jiangxi Agricultural University,Nanchang 330045,China; 3. Anhui Province Key Labora-tory of Microbial Control,Anhui Agricultural University,Hefei 230036,China)
Abstract: Atritrophic association was reported in this paper,involving a cicada nymphs ( Ho moptera: Cicadidae) infected by Cordyceps chanhua,which was infected in turn by Syspastospora parasitica. Both morphorlogical obversation and molecular identification confirmed this assumption. The results of Koch's method showed that the mycoparasite isolate had a wide range host fungi be side Cordyceps chanhua,including Isaria tenuipes,Beauveria bassianan and a Beauveria sp.
Key words: Syspastospora parasitica; Cordyceps chanhua; hyperparasitism
基金项目:安徽省高校自然科学基金项目( KJ2016A491) ,安徽省自然科学基金项目( 1808085QC78)
作者简介:张胜利,男,副教授,研究方向:昆虫真菌系统进化及生态学。
收稿日期: 2020-07-27
通信作者:李增智,E-mail: zzli@ahau.edu.cn
寄生凹孢Syspastospora parasitica ( Tu..) P.F. Cannon & D. Hawksw是一种常见的昆虫病原真菌的重寄生真菌,主要寄生虫草科和线虫草科的真菌,包括棒束孢属Isaria、白僵菌属Beauveria、轮枝孢属Verticillium以及被毛孢属Hirsutella的一些种。寄生凹孢分布广泛,不列颠群岛和欧洲大陆的一些国家、斯里兰卡、肯尼亚、南非、特立尼达岛和加拿大均有记录[1]。该种可以通过特化的接触细胞来寄生其寄主的菌丝,同时产生暗褐色并具有小球状基部和长颈的子囊壳。该种于1857年被L. Tulasne首次描述为Sphaeronaema parasitica,但仅 8年后他和他的兄弟C. Tulasne又将其移入黑壳孢属Melanospora,此后一直被当作黑壳孢属Melanos pora的相近种[1]。1982年,Cannon和Hawksworth 正式建立以Syspastospora parasitica为模式种的凹孢属Syspastospora,其区别黑壳孢属的主要特征包括由具隔膜的平行菌丝组成的子囊壳喙以及具有截形末端的柱形或梭形孢子[1]。该属另外2个种 S. boninensis[2]和S. tropicalis[3]均分离自土壤。
寄生凹孢S. parasitica已被报道寄生在各种昆虫病原真菌上,例如侵染秦皮球象Stereonychus fraxini[4]、马铃薯叶甲Leptinotarsa decemlineata[5] 和苹果蠹蛾Cydia pomonella[6]的球孢白僵菌;侵染肯尼亚粉蚧Planococcus kenya Le Pelley的轮枝孢属真菌Verticillium spp.[7];侵染未知昆虫[5]和尺蠖Boarmia bistortata[6]的粉棒束孢Isaria farinosus( ≡Paecilomyces farinosus,≡Spicaria fari nosus) ;侵染家蚕Bombyx mori的细脚棒束孢 Isaria tenuipes( ≡Paecilomyces tenuipes) [8];侵染松异舟蛾Thaumetopoea pityocampa ( Schiff.)的玫烟色棒束孢( Isaria fumosorosea ) ( ≡ Spicaria fu mosorosea,≡Paecilomyces umosoroseus) [6];侵染鳃角金龟属昆虫的布氏白僵菌Beauveria brongniartii (旧称卵孢白僵菌Beauveria tenella) [6]。在我国, 武靓文[9]于1987年首次在北京西山油松林的石块下发现感染球孢白僵菌Beauveria bassiana的越冬松毛虫上长出一些黑色针状的毛刺,分离、鉴定后确定其为球孢白僵菌的重寄生真菌寄生黑壳孢 Melanospora parasitica。
蝉花又名蝉棒束孢Isaria cicadae Miquel,旧称蝉拟青霉Paecilomyces cicadae ( Miquel ) Samaon,是我国南方常见的昆虫病原真菌,在食药用开发以及生物防治方面具有很大潜力。李增智等根据江西井冈山的有性型标本建立了我国本土蝉花与虫草属有性型的联系,并命名了1个新种Cordyceps chanhua,同时证实世界广布的蝉花 Isaria cicadae是1个复合种(出版中)。因此,文中使用Cordyceps chanhua做为我国“蝉花”的正确名称。
笔者在对安徽省蝉花种质资源进行调查时, 在安庆地区发现了1个蝉花引起的蝉若虫流行病群体。研究中发现,很多侵染蝉若虫的蝉花孢梗束被其他真菌侵染。本文主要对这一新的重寄生现象进行研究,分离并鉴定该重寄生真菌为寄生凹孢。
1 材料和方法
1.1 样品来源
2016年7月,张胜利在安徽省安庆市花山中方寺院附近毛竹林下(海拔293 m) ,采集得到 10株奇特的蝉花标本,在其孢梗束尖端分生孢子产生部位观察到疑似重寄生菌的黑色刺状物。本研究选取编号为AQ20150712 - 12的标本进行分离培养,得到含重寄生菌的分离株,编号为BZXY- SS-1,保存于亳州学院生物工程研究所。
试验中用于柯赫氏法则验证的靶标菌包括蝉花( BZXY2016-12)、细脚棒束孢( BZXY2017-5)、 球孢白僵菌( BZXY2017 - 3)以及分离自虫草的 1株白僵菌Beauveria sp. ( BN22)均分离自野外采集的标本。
1.2 蝉花重寄生真菌的分离培养
用灭菌接种针挑取标本孢梗束上含有子囊壳的菌体,划线于含有孟加拉红的PDA培养基, 22℃培养,待获得含有重寄生菌的培养物后,移至 V8果汁培养基( V8果汁200 g,CaCO3 3.0 g,琼脂20.0 g,蒸馏水1 000 mL,pH 5.8)斜面上培养后保藏备用。
1.3 重寄生真菌的鉴定
1.3.1 形态学鉴定
将分离的含重寄生菌培养物点接到PDA和V8果汁培养基上,22℃培养 10 ~ 20 d观察菌落形态并拍照。利用新鲜培养物制作水浸片在微分干涉显微镜(奥林巴斯BX53) 下进行观察、测量和特征结构的显微拍照。分生孢子大小测量样本数为50个,子囊壳等其他结构测量样本数近30个。
1.3.2 分子生物学鉴定
选择黑色子囊壳比较明显的培养平皿刮取皿盖上的菌体,采用真菌基因组提取试剂盒(上海生物工程有限公司)提取 DNA。LSU nrDNA片段采用引物LS1 / LR5[10-11] 进行PCR扩增。PCR反应条件和程序参照 Meyer等[12]方法。参照黄勃等[13]方法采用真菌通用引物ITS4 / ITS5对ITS序列进行扩增。扩增产物的纯化与测序送至上海生物工程有限公司完成,获得序列上传至ENA ( European Nucleotide Archive )。采用DNAMAN 10软件( Lynnon Biosoft,Quebec,Canada)与NCBI上相关序列进行比对,并利用MEGA7. 0软件[14]构建系统发育树。构建系统发育树时首先将基因矩阵用软件 Bioedit[15]进行比对和编辑,然后用MEGA7. 0进行模型检测,采用合适的建树模型构建最大简约法系统发育树。
1.4 寄生性的验证
采用平板对峙法,将蝉花和细脚棒束孢等寄主真菌与分离的重寄生菌间隔3 cm进行对峙培养, 观察重寄生菌与寄主真菌的拮抗作用以及重寄生现象。每个处理5次重复,于7,10,14,20 d观察。
2 结果与分析
2.1 蝉花重寄生真菌形态学鉴定
标本AQ20150712 - 12,蝉花寄主为蝉若虫。重寄生真菌黑色子囊壳在蝉花孢梗束顶端产生分生孢子部位密集丛生,孢梗束柄部未见黑色子囊壳(图1-A)。
将子囊壳接种于PDA培养基上不生长,即离开寄主真菌,得不到重寄生菌的纯培养物。在 PDA培养基和V8果汁培养基上被重寄生的培养物菌落相似,22℃下菌落生长速度一般,10 d直径可达40 ~ 50 mm,白色、棉絮状或绒毛状,厚度可达5 ~ 7 mm,有时菌丝可长满皿盖。被寄生的菌落生长约10 d开始产生寄生物的子囊壳,且在 V8果汁培养基上比在PDA培养基上更早、更容易产生(图1-B)。被寄生菌菌落表面上方的重寄生菌菌丝呈更为疏松的细绒毛状。子囊壳表生或者半埋生在被寄生菌落上(图1-C) ,基部球形或近球形,幼时黄褐色,成熟时黑色,无毛或者偶有菌丝从体壁散出,直径157. 0 ~ 240. 0 ( X = 210.4) μm,具有柱状长颈,颈部长880.0 ~ 1 467.1 ( X = 1 231.1) μm;壁半透明,淡褐色,由薄壁组织构成;长颈部锥状或微弯曲,由平行菌丝构成,基部宽37.0 ~ 71.7( X = 56.1) μm,顶部宽20.8 ~ 32.5 ( X = 28.1) μm,截形或钝状。未观察到子囊。子囊孢子单细胞,柱状,壁光滑,7.9 ~ 11.1( X = 9.3) × 1.78 ~ 2.38( X = 2.0) μm,具3 ~ 4个滴状斑点或萌发孔,端部截形。初期2个子囊孢子重叠成双层子囊孢子。根据以上形态特征鉴定本研究菌株为寄生凹孢。
本研究菌株子囊孢子长7.9 ~ 11.1 μm,比韩国菌株的子囊孢子( 4 ~ 9 μm)稍长[8],比其他报道的菌株( 5 ~ 6 μm或6 ~ 7 μm[16-17])更长。子囊孢子大小的多样性与Cannon等研究结果一致[1]。
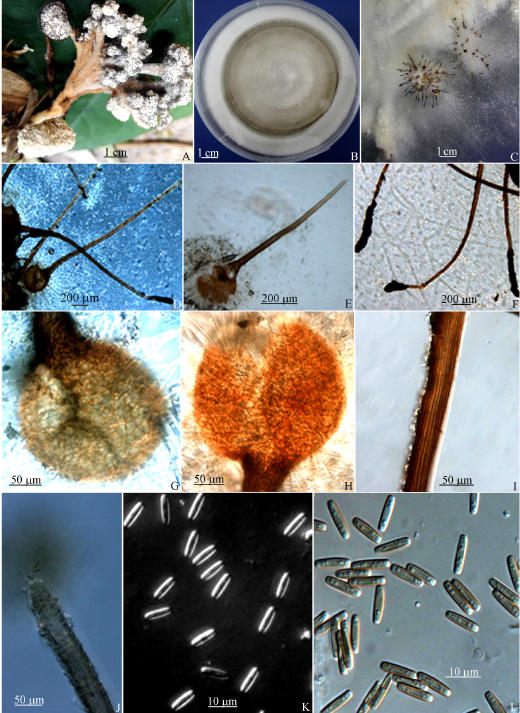
A.自然界中被重寄生的蝉花孢梗束Natural synnemata of Cordyceps chanhua infected by Syspastospora parasitica; B.被寄生凹孢寄生的蝉花培养物Cordyceps chanhua cultures parasitized by Syspastospora parasitica; C.菌丝上的子囊壳Perithecia on mycelia; D,E.孕有子囊孢子的具长颈的子囊壳Perithecial neck and cavity filled with ascospores; F.被菌丝包被的成熟子囊壳颈顶端Tips of mature perithecial neck covered by hyphae; G,H.裂开的子囊壳基部Broken perithecial base; I.由平行菌丝构成的子囊壳颈部的内部结构Internal struc ture of perithecial neck consisting of parallel hyphae; J.子囊壳颈钝的顶部及溢出的子囊孢子Obtuse tip of perithecial neck and escaping ascospores; K.双层子囊孢子Two-layered ascospores; L.成熟的子囊孢子Mature ascospores
图1 蝉花重寄生真菌寄生凹孢的形态特征
Fig.1 Morphology of Syspastospora parasitica,mycoparasite of Cordyceps chanhua
2.2 分子生物学鉴定
重寄生菌BZXY -SS - 1的28S rDNA -LSU与 ITS序列的ENA登录号分别为LR777862和 LR778133。经序列比对分析,其28S rDNA-LSU与 GeneBank上以Syspastospora parasitica名提交的菌株IMI 255607(登陆号为AY015634)相似率仅为 7..23%(比对长度为859 bp) ,显然不是同一个种。 而BZXY-SS-1的ITS序列经NCBI的ITS序列库比对,得分最高的菌株分别为Papulaspora fun abasensis JCM 7689 (登录号为NR _ 154383 )、 Microthecium quadrangulatum CBS 112763 (登录号 NR_160999)和Echinusitheca citrispora CBS 137837 (登录号为NR_160998) ,但相似度均低于85%。 这表明BZXY-SS-1的ITS序列与寄主蝉花无关, 排除了扩增模板DNA被寄主真菌污染的可能。
参照Zhang等[18]黑孢壳属以及相近的长喙壳科Ceratostomataceae真菌的分子系统发育分析结果,通过NCBI检索共得到相关近似真菌的28S rDNA-LSU序列44条,利用MEGA7.0软件构建最大简约法系统发育树( > 60%自举值被标在分支的上方)。系统发育分析结果(图2)表明,菌株BZXY-SS-1与Melanospora和Sphaerodes属所在的黑壳孢目Melanosporales真菌聚类在一起, 且远离其他分支。而鉴定为Syspastospora parasitica的菌株IMI 255607则与肉座菌目Hypo creales的菌株聚类在一起。Castlebury等[19]已通过28S rDNA-LSU和18S rDNA-SSU证实Melano spora和Sphaerodes属分类地位属于黑壳孢目,并推翻之前属于肉座菌目的假设。而Melanospora 属为Syspastospora属的近缘种,本研究系统发育分析结果与上述研究结果一致。鉴于BZXY-SS- 1的寄主蝉花属于肉座菌科的近缘科虫草科,推测菌株IMI 255607的序列实际属于其寄主菌,而本研究测定的序列才是真正的寄生凹孢菌序列。 且本研究的菌株明显具备黑壳孢目长喙壳科的特征,因此结合形态学和分子系统学数据证实寄生凹孢菌S. parasitica属于黑壳孢目而非肉座菌目。
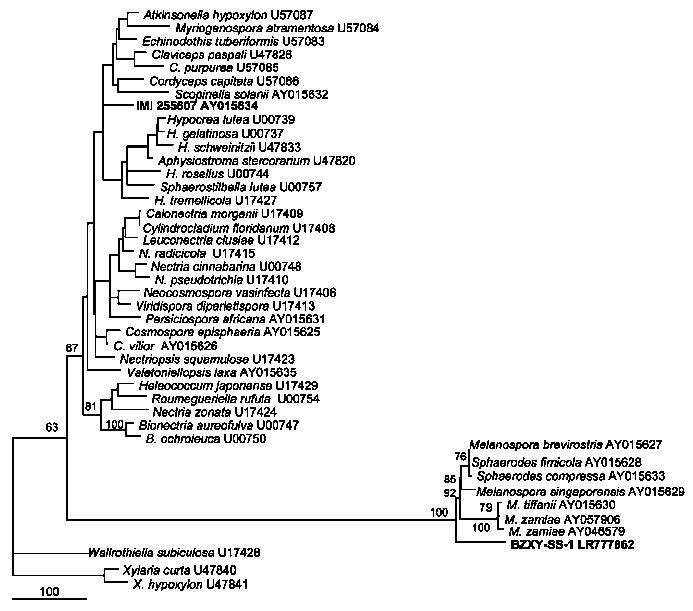
图2 基于大亚基核糖体DNA部分序列的最大简约法系统发育树
Fig.2 Phylogenetic tree of maximum likelihood based on partial LSU nrDNA sequences dataset
3 柯赫氏法则验证
采用平板对峙法,将蝉花( BZXY2016 - 12)、 细脚棒束孢( BZXY2017 - 5 )、球孢白僵菌( BZXY2017 - 3)以及分离自虫草的1株白僵菌 Beauveria sp. ( BN22)寄主真菌与分离的重寄生菌进行对峙培养(图3)。7 ~ 10 d所有寄主真菌均会与重寄生真菌接触形成对峙,但主要表现为空间竞争效益,而未见明显的拮抗作用。待重寄生菌菌落已开始产生黑色子囊壳,寄主菌落表面尚未见重寄生菌子囊壳的形成。但随着培养时间的延长( 10 ~ 14 d) ,各种寄主真菌菌落逐渐开始形成黑色子囊壳,表明重寄生真菌已成功侵入寄主真菌菌落。约20 d整个平板包括寄主真菌菌落一侧均可见黑色子囊壳。在以上4种供试寄主真菌中,球孢白僵菌和虫草子座无性型白僵菌分离子产生子囊壳的时间比其他2种菌要晚3 ~ 4 d。 这可能由于2种白僵菌的生长速度较慢,与重寄生菌寄主较晚接触有关;此外,寄主真菌快速大量产孢似乎不利于重寄生菌的侵入。总之,平板对峙侵染试验结果表明,重寄生菌寄生凹孢在寄主菌落表面能够形成与自然采集标本同样的症状, 即黑色子囊壳。因此,进一步证实了该重寄生真菌分离株为蝉花等寄主真菌的重寄生菌。
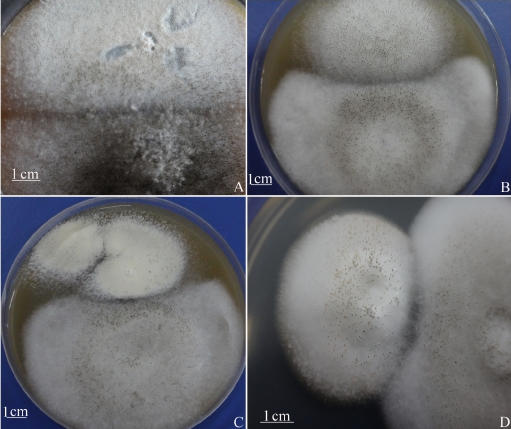
A.蝉花与重寄生菌寄生凹孢的对峙培养及被寄生菌落Colony of infected Isaria cicadae by Syspastospora parasitica in confronting incuba tion test; B.细脚棒束孢与重寄生菌对峙培养及被寄生菌落Colony of infected I. tenuipes by S. parasitica in confronting incubation test; C.球孢白僵菌与重寄生菌对峙培养及被寄生菌落Colony of infected Beauveria bassiana by S. parasitica in confronting incubation test; D.分离自虫草的白僵菌无性型BN22与重寄生真菌对峙培养及被寄生菌落Colony of infected Beauveria sp. BN22 of Cordyceps anamor-ph by S. parasitica in confronting incubation test
图3 重寄生菌柯赫氏法则验证
Fig.3 Verification of mycoparasite with koch's postulate
4讨论
昆虫病原真菌的重寄生现象是一个有趣的研究课题。从害虫生物防治的角度看,需要了解昆虫病原真菌的重寄生菌对生物防治效果的不利影响。Hajek等[20]曾报道过舞毒蛾的病原真菌噬虫霉休眠孢子被壶菌Gaertneriomyces semiglobifer重寄生的现象。噬虫霉的休眠孢子能够在土壤中积累对持续控制害虫舞毒蛾有重要作用,然而重寄生菌的侵染可能是导致噬虫霉的侵染水平存在很大波动的生物因素之一。随后他们采用分子技术和诱捕法调查被寄生的噬虫霉休眠孢子中可能存在的重寄生真菌,结果发现土壤中的休眠孢子被多种重寄生真菌寄生并最终鉴定出1种普可尼亚菌Pochonia sp.和一些腐霉Pythium spp.[21]。 Krauss等[22]调查了昆虫病原真菌球孢白僵菌 Beauveria bassiana、金龟子绿僵菌Metarhizium ani sopliae、玫烟色棒束孢Isaria fumosoroseus ( = Paecilomyces fumosoroseus)和广寄主的3种重寄生真菌Clonostachys spp.,哈茨木霉Trichoderma har zianum和蜡蚧霉Lecanicillium lecanii之间的相容性,体外测试研究发现金龟子绿僵菌对3种重寄生真菌高度易感,球孢白僵菌能够被粉红粘帚霉 Clonostachys rosea侵染而玫烟色棒束孢Isaria ( Paecilomyces) fumosoroseus对重寄生菌表现出抗性。体内生物测定结果表明昆虫病原真菌与重寄生菌一起应用并不影响害虫生物防治的效果,尽管生防菌重新分离的成功率显著减少。因此,重寄生真菌和昆虫病原真菌在有害生物防治中似乎是相容性的因素。在本研究中,重寄生菌发生在蝉花引起蝉若虫流行病的群体中,重寄生率高达 14%( 10 /70) ,这对抑制昆虫的真菌流行病的大发生,维持寄主-寄生物(病原物) -重寄生物之间的生态平衡可能存在一定作用。
昆虫可以和动物、植物和微生物建立广泛的联系,不仅在地球生态系统中占据重要地位,而且对人类生产和生活产生重要影响。真菌是和昆虫联系最为密切的生物之一,然而它们之间的关系不仅仅表现为真菌寄生(致病)昆虫、昆虫噬食真菌或二者共生等简单关系,昆虫-昆虫病原真菌-重寄生真菌这种三级营养关系在自然界中也越来越多地被发现。除了寄生凹孢,多头霉属 Polycephalomyces也是昆虫病原真菌重寄生真菌的重要来源[23-26]。该属的枝多头霉.. ramosus ( Peck) Mains为最常见的昆虫病原真菌重寄生菌[27]。此外,代永东等[28]报道寄生于蛹虫草子座尖端的1种真菌( No.YHIFXS-I001) ,通过形态和ITS测序鉴定其为粉棒束孢I. farinosus。值得注意的是,粉棒束孢本身也是昆虫病原真菌。除了重寄生现象之外,昆虫生物体内还存在2种病原真菌侵染同1个昆虫的复合侵染现象。例如, 笔者在研究家蚕真菌病时发现同一家蚕同时被球孢白僵菌和莱氏绿僵菌Metarhizium rileyi侵染。 昆虫病原真菌和寄主构成的复杂微生物系统,必然不只是给虫草无性型的确定带来困难,而同时也给确定的方法带来了重要启示。因此,基于昆虫生物体的昆虫真菌的微生态学和微生物组学研究应该引起人们足够的重视。
参考文献:
[1] Cannon P F,Hawksworth D L. A re-evaluation of Melanospora Corda and similar Pyrenomycetes,with a revision of the British species[J]. Botanical Journal of the Linnean Society,1982,84 ( 2) : 115-160.
[2] Horie Y,Udagawa S,Cannon P F.Four new Japanese species of the Ceratostomataceae ( Ascomycetes) [J].Mycotaxon,1986,25 ( 1) : 229-245.
[3] Garcia D,Stchigel A M,Guarro J.A new species of Syspastospora from tropical soils[J].Mycologia,2002,94( 5) : 862-865.
[4] Markova G.Melanospora parasitica attacking Beauveria bassiana on ash weevil Stereonychus fraxini in Bulgaria[J].Journal of In vertebrate Pathology,1991,58( 3) : 450-452.
[5] Posada F,Vega F E,Rehner S A,et al.Syspastospora parasitica,a mycoparasite of the fungus Beauveria bassiana attacking the Colorado potato beetle Leptinotarsa decemlineata: a tritrophic as sociation[J].Journal of Insect Science,2004,4( 24) : 1-3.
[6] Müller-Kgler E. Melanospora parasitica Tul.als Parasit der in-sektenpathogenen Beauveria tenella ( Delacr.) Siem [J]. Zeitschrift Für Pflanzenkrankheiten Und Pflanzenschutz,1961, 68 ( 10 /11) : 600-605.
[7] Masaba D M. Coffee breeding & physiology[J]. Review of Kenyan Agricultural Research,1998,25: 53.
[8] Lee S,Nam S H. A mycoparasitic ascomycete Syspastospora par-asitica on the entomopathogenic fungus Paecilomyces tenuipes
growing in Bombyx mori [J]. Mycobiology,2000,28 ( 3 ) :130-132.
[9] 武觐文.一种昆虫病原真菌寄生菌的调查和鉴定[J].北京林业大学学报,1987,9( 2) : 158-161.
[10] Rehner S A,Samuels G J.Molecular systematics of the Hypoc-reales: a teleomorph gene phylogeny and the status of their an amorphs[J].Canadian Journal of Botany,1995,73( suppl.) :816-823.
[11] Hausner G,Reid J,Klassen G R.On the subdivision of Cerato-cystis s.l.,based on partial ribosomal DNA sequences[J]. Ca nadian Journal of Botany,1993,71( 1) : 52-63.
[12] Meyer J M,Hoy M A,Boucias D G.Morphological and molecu-lar characterization of a Hirsutella species infecting the Asian Citrus psyllid,Diaphorina citri Kuwayama ( Hemiptera: Psylli dae) ,in Florida[J]. Journal of Invertebrate Pathology,2007, 95( 2) : 101-109.
[13] 黄勃,王四宝,金伟,等.家蚕灰僵病病原的鉴定[J].蚕业科学,2008,34( 2) : 257-261.
[14] Kumar S,Stecher G,Tamura K.MEGA7: molecular evolutionary genetics analysis version 7.0 for bigger datasets[J]. Molecular Biology and Evolution,2016,33( 7) : 1870-1874.
[15] Hall,T A. BioEdit: A User-Friendly Biological Sequence A-lignment Editor and Analysis Program for Windows 95 /98 / NT [J].Nucleic Acids Symposium Series,1999,41,95-98.
[16] Petch T. British hypocreales[J]. Transactions of the British Mycological Society,1938,21( 3 /4) : 243-301.
[17] Doguet G.Le genre Melanospora: biologie,morphologie,develo-ppement,systmatique[J].La Botaniste,1955,39: 1-313.
[18] Zhang N,Blackwell M. Molecular phylogeny of Melanospora and similar pyrenomycetous fungi[J]. Mycological Research, 2002,106( 2) : 148-155.
[19] Castlebury L A,Rossman A Y,Sung G H,et al.Multigene phy-logeny reveals new lineage for Stachybotrys chartarum,the in door air fungus[J]. Mycological Research,2004,108 ( 8 ) :864-872.
[20] Hajek A E,Longcore J E,Rabern Simmons D,et al. Chytrid mycoparasitism of entomophthoralean azygospores[J]. Journal of Invertebrate Pathology,2013,114( 3) : 333-336.
[21] Castrillo L A,Hajek A E. Detection of presumptive mycopara-sites associated with Entomophaga maimaiga resting spores in forest soils[J]. Journal of Invertebrate Pathology,2015,124:87-89.
[22] Krauss U,Hidalgo E,Arroyo C,et al. Interaction Between the Entomopathogens Beauveria bassiana,Metarhizium anisopliae and Paecilomyces fumosoroseus and the Mycoparasites Clonos tachys spp.,Trichoderma harzianum and Lecanicilliumlecanii [J].Biocontrol Science and Technology,2004,14( 4) : 331-346. [23] Wang W J,Wang X L,Li Y,et al.Molecular and morphological studies of Paecilomyces sinensis reveal a new clade in clavicipi taceous fungi and its new systematic position[J]. Systematics and Biodiversity,2012,10( 2) : 221-232.
[24] Ban S,Sakane T,Toyama K,et al.Teleomorph-anamorph rela-tionships and reclassification of Cordyceps cuboidea and its al lied species[J].Mycoscience,2009,50( 4) : 261-272.
[25] Wang Y B,Yu H,Dai Y D,et al.Polycephalomyces agaricus,a new hyperparasite of Ophiocordyceps sp. infecting melolonthid larvae in southwestern China[J].Mycological Progress,2015, 14( 9) : 70.
[26] Wang Y B,Yu H,Dai Y D,et al.Polycephalomyces yunnanensis ( Hypocreales) ,a new species of Polycephalomyces parasitizing Ophiocordyceps nutans and stink bugs ( hemipteran adults) [J].Phytotaxa,2015,208( 1) : 34-44.
[27] 梁宗琦,陈万浩,梁建东,等.一个蚁巢中束梗孢类昆虫病原真菌的多型现象Ⅰ[J].菌物学报,2016,35 ( 8 ) :906-917.
[28] 代永东,虞泓,杨坤.1株重寄生真菌粉棒束孢鉴定及系统发育分析[J].中国食用菌,2013,32( 5) : 46-52.
(责任编辑:王丽兰)