互利真菌通过诱导 HSP83,在“病原识别—抗菌效应”两个层级抑制 Toll 抗真菌免疫,使宿主在多种真菌并存时避免免疫过度激活并提高存活。
——文献信息——
题目:Symbiont-Induced HSP83 Establishes Two-Tiered Control of Antifungal Immunity in an Invasive Beetle-Fungus Complex
期刊:Advanced Science
发表时间:2026年8月27日
通讯作者:Zhen Zou、Le Kang、Jianghua Sun
研究对象:红脂大小蠹Dendroctonus valens(RTB);互利真菌Leptographium procerum(Lp);拮抗真菌Ophiostoma minus(Om)
研究方向:宿主-微生物互作;共生菌介导免疫;抗真菌免疫;生物入侵;昆虫-真菌共生
DOI:10.1002/advs.77421
一、研究概况
宿主需要容忍互利微生物,同时识别并抵御拮抗者;但当两类微生物同时出现时,免疫系统如何既保持防御、又避免代价高昂的过度激活,仍缺少清晰的分子解释。本研究以 RTB-Lp-Om 三方互作为模型,解析入侵昆虫在互利真菌与本地拮抗真菌并存时的抗真菌免疫调控。
研究团队综合采用 RNA sequencing(RNA-seq,RNA 测序)、RNAi 、重组蛋白补充、GST pull-down 、Co-IP 、data-independent acquisition proteomics(DIA 蛋白质组学)、immunofluorescence(免疫荧光)以及 Drosophila S2 cells(果蝇 S2 细胞)异源表达等手段,最终锁定 HSP83,并证明它在病原识别层和效应转录层对抗真菌免疫实施连续两级负调控。
二、研究背景
红脂大小蠹原产北美,传入中国后与 Lp 形成高破坏性的甲虫-真菌入侵复合体。Lp 不仅能协助甲虫利用寄主松树,还可提高其在中国油松上的定殖能力;与此同时,入侵种在新环境中会遭遇 Om 等本地拮抗真菌。Om 能抑制幼虫取食和发育,并显著降低存活,因此宿主必须在“保留互利伙伴”和“抵御本地拮抗者”之间取得平衡。
昆虫抗真菌防御主要依赖 pattern-recognition receptors(PRR,模式识别受体)识别真菌表面的病原相关分子模式,并通过 Toll 免疫信号通路激活 NF-κB(核因子 κB)类转录因子 Dorsal,进一步诱导 antimicrobial peptide(AMP,抗菌肽)表达。然而,Lp 与 Om 亲缘关系较近,可能共享部分可被免疫系统识别的分子特征。宿主如何在不完全关闭免疫监视的前提下避免对共生伙伴和混合真菌群落反应过强,是本研究的核心问题。
三、研究结果
1:互利真菌缓解拮抗真菌的致死效应,并压低过强的免疫输出研究者将表面灭菌的 RTB三龄幼虫分别暴露于 Lp、Om、两种真菌混合物(L&O)或 PBS 中。Om 单独暴露显著降低幼虫存活;而 Lp 与 Om 同时出现时,Om 引起的死亡得到部分缓解,幼虫存活接近对照水平。
转录组和蛋白检测显示,Om 会显著诱导 PGRP-SA、PGRP-SC2、βGRP3、βGRP5 等 PRR,以及 Attacin、Defensin 和 Diptericin 等 AMP;但 Lp 单独处理几乎不诱导这些免疫基因,L&O 组的免疫激活也明显弱于 Om 组。体外实验进一步表明,PRR 能结合 Om,却不能结合 Lp。由此可见,Lp 并不是简单阻止宿主“看见”Om,而是在混合暴露时压低了识别之后的免疫输出。
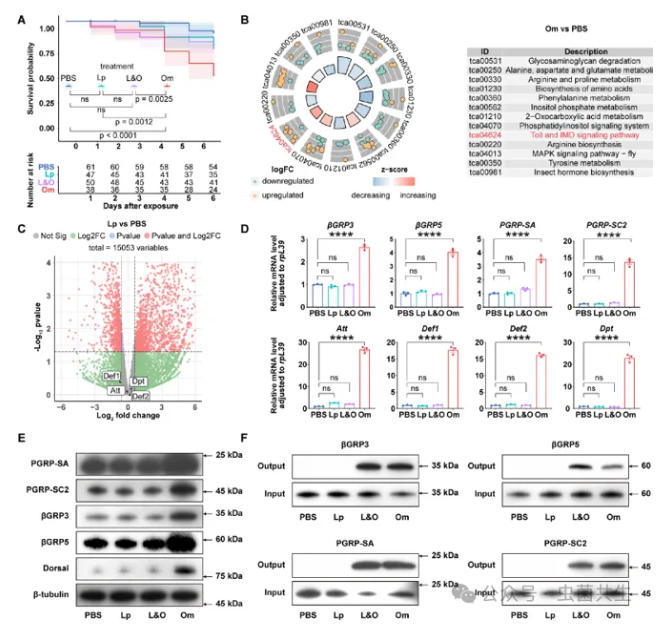
图1 | Lp 帮助 RTB 缓解 Om 的致死效应,并削弱 Om 诱导的PRR/AMP 免疫激活。
2: Lp 诱导 HSP83,而 HSP83 是混合真菌暴露下宿主存活的关键
为寻找 Lp 介导免疫耐受的核心调节因子,研究团队从 Lp 和 L&O 共同影响的免疫相关差异表达基因中构建蛋白互作网络,并筛出 HSP83、TRAF6、MyD88、Pelle、Cactus 等 7 个枢纽基因。其中,只有 HSP83 在 Lp 和 L&O 条件下持续升高,而在 Om 单独暴露时下降,因此成为最具特异性的候选因子。
qRT-PCR 和 Western blot 证实,Lp 可同时提高 HSP83 的转录与蛋白水平。敲低 HSP83 后,Lp 组和 L&O 组幼虫的存活率显著下降,而 Om 组变化不明显。这说明 HSP83 并非一般性的抗真菌杀伤分子,而是 Lp 诱导、专门支持宿主在互利真菌或混合真菌环境中存活的免疫调节因子。
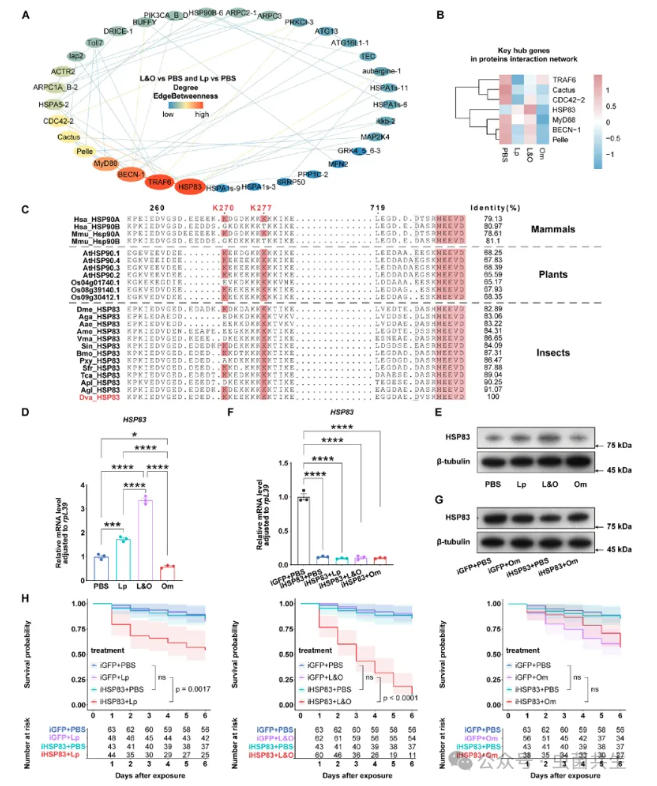
图2|Lp 与 L&O 处理诱导 HSP83 表达;敲低 HSP83 后,幼虫在 Lp 和 L&O 条件下的存活显著下降。
3:HSP83 限制 Toll 通路过度激活,并缓解免疫-代谢权衡
HSP83 被敲低后,真菌暴露会使 Toll 与 IMD(免疫缺陷)信号相关基因大幅上调,同时碳水化合物、氨基糖、碳代谢和氮代谢等多条代谢通路受到抑制。在 Om 条件下,56 个 Toll 通路基因中有 16 个显著上调,而 41 个 IMD 通路基因中仅 3 个上调,说明 HSP83 的主要作用对象是 Toll抗真菌通路。
功能验证与这一结果一致:敲低 HSP83 会提高 PRR、Dorsal 与 AMP 的表达;向幼虫补充重组 HSP83 蛋白,则可反向压低 Om 诱导的免疫基因表达。值得注意的是,HSP83 缺失在没有真菌刺激时几乎不改变这些免疫蛋白,表明它主要限制“被挑战后的过度反应”,而不是普遍关闭基础免疫。
4:第一层调控:HSP83 结合特定 PRR,削弱对 Om 的识别
免疫荧光显示,Lp 存在时 HSP83 信号增强,并部分分布于细胞膜边界。GST 下拉进一步证明,HSP83 可直接结合 PGRP-SA、βGRP3 和βGRP5,但不结合 PGRP-SC2。将 HSP83 与这些 PRR 预先混合后,PRR 在 Om 孢子结合组分中的回收量明显下降,说明 HSP83 会干扰部分 PRR 与拮抗真菌之间的结合。
结构预测与突变实验还锁定了E15 位点:E15A 突变体仍能结合真菌孢子,却失去与 PRR 的可检测相互作用,也无法再降低 PRR-真菌结合。这一结果表明,HSP83 的抑制效应并非来自简单的“抢占真菌表面”,而依赖HSP83-PRR 之间的特定关联。
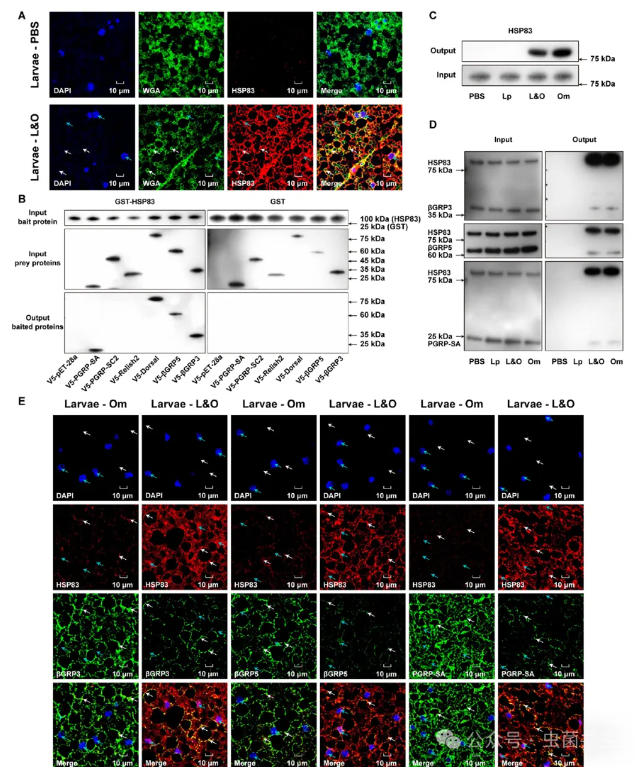
图3|HSP83 与 PGRP-SA、βGRP3 和βGRP5 发生关联,并降低这些 PRR 对 Om 的结合;组织免疫荧光支持二者在细胞膜边界附近发生空间重叠。
5:第二层调控:HSP83 结合 Dorsal,限制 AMP 转录
在下游效应层面,Co-IP-DIA蛋白质组学、GST 下拉和组织免疫荧光均支持 HSP83 与 Toll 通路核心转录因子 Dorsal 发生关联。在 Om 单独暴露时,HSP83 信号较弱,Dorsal 明显进入血细胞细胞核;而 L&O 条件下,HSP83 上调并与 Dorsal 呈现更强的空间重叠。
在果蝇 S2 细胞中,DvDorsal 可强烈诱导多种 AMP 基因;当 DvHSP83 与 DvDorsal 共表达时,这些 AMP 的转录显著降低。由此,HSP83 构成第二道“刹车”:即使上游识别仍然发生,它仍可在转录因子层面限制抗菌效应输出,避免免疫反应过强。
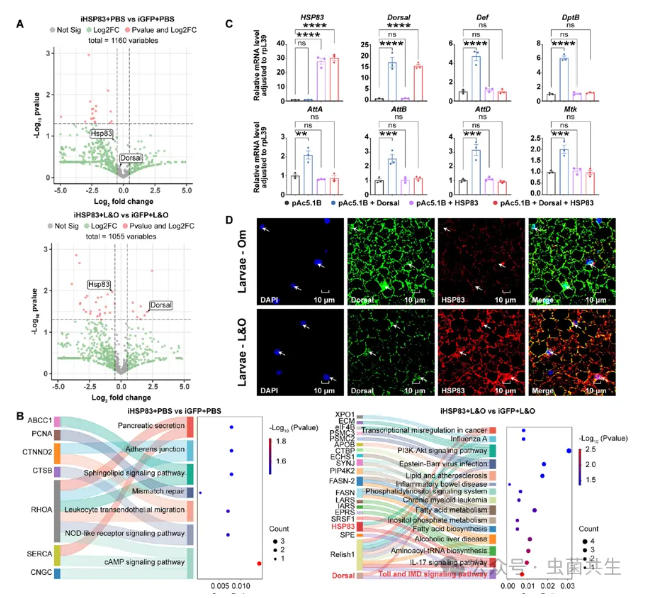
图4 | HSP83 与 Dorsal 形成情境依赖的关联,并在果蝇 S2 细胞中抑制 Dorsal 驱动的 AMP 转录。
四、创新点
1:揭示共生真菌主动调控宿主抗真菌免疫
研究不再把互利真菌视为被动逃避免疫的对象,而是证明 Lp 可主动诱导宿主 HSP83,进而重塑宿主面对多种真菌时的免疫强度。
2:提出“识别层—效应层”连续两级负调控机制
HSP83 一方面结合特定 PRR、削弱对 Om 的识别,另一方面结合 Dorsal、限制 AMP 转录,把上游识别与下游效应串联为同一套调控架构。
3:解释宿主如何兼顾免疫监视与共生耐受
HSP83 并未彻底关闭抗真菌免疫,而是在保留部分 PRR 监视的同时限制过强输出,为亲缘相近、分子特征可能重叠的互利真菌与拮抗真菌共存提供了机制解释。
4:提出不依赖宿主遗传突变的快速入侵适应路径
共生伙伴可即时改变宿主免疫投入、缓解免疫-代谢权衡,为入侵昆虫在新环境中的快速调整提供“共生菌辅助适应”机制,也使 HSP83-PRR/Dorsal 轴成为潜在生物防控靶点。
论文链接
https://pubmed.ncbi.nlm.nih.gov/42658484/