四酶分步法制备蛹虫草多肽及其通过Nrf2通路缓解UVB氧化损伤的研究
潘 蕾 1, *,何美玲 1,刘 冉 2,吕景娣 3
(1.濮阳医学高等专科学校,河南 濮阳 457000;2.清丰县妇幼保健院,河南 濮阳 457399;3.河南中医药大学,河南 郑州 450046)
摘要:为了优化基于酶解法的蛹虫草多肽(CMP)制备方法,并进一步揭示蛹虫草多肽的抗氧化活性和机制。本研究以蛹虫草提取虫草素后的剩余物为原料,采用碱提酸沉法提取蛹虫草蛋白,优化了蛹虫草多肽的复合酶解工艺。检测了不同质量浓度蛹虫草多肽及粗蛋白(0.1,0.2,0.5,1.0,2.0,4.0 mg/mL)对DPPH、ABTS和·OH自由基的清除率。另外,将HaCaT细胞分别用0.5,1.0,2.0 mg/mL蛹虫草多肽预处理24 h,然后再用UVB照射24 h后,采用CCK-8法检测细胞活力。DCFH-DA荧光探针法测定细胞内活性氧(ROS)水平。按试剂盒说明书分别检测细胞内SOD、CAT、GSH-Px活性以及MDA含量。采用Western blot测定细胞内Nrf2/Keap1通路活性。结果显示,蜗牛酶+胃蛋白酶+木瓜蛋白酶+碱性蛋白酶复合酶解的蛹虫草多肽指数为84.25%±6.15%,为最佳酶组合。蛹虫草多肽对DPPH、ABTS和·OH自由基的IC50依次为1.67,3.02和1.49 mg/mL。与M组比较,CMP-L/M/H组和VC组的相对细胞活力升高,ROS相对荧光强度降低,SOD、CAT和GSH-Px活性升高,MDA含量降低,Nrf2(细胞核)蛋白水平升高,Keap1蛋白水平降低,且有剂量依赖性(P<0.05)。本研究优化的四酶分步酶解工艺可高效制备蛹虫草多肽,该多肽通过直接清除自由基及激活Nrf2/Keap1通路增强细胞内源性抗氧化能力,从而缓解UVB诱导的HaCaT细胞氧化损伤。
关键词:蛹虫草;多肽;酶解法;抗氧化活性;Nrf2/Keap1通路
中图分类号:TQ658
文献标识码:A
文章编号:2097-2806(2026)07-0910-09
Received: January 21, 2026; Revised: June 26, 2026.
*Corresponding author. E-mail: cjw_83@126.com.
2025年度河南省高校人文社会科学研究一般项目(2025-ZZJH-128)
在日用化学品行业向“绿色、天然、安全”转型的背景下,天然活性抗氧化剂因兼具功效性与安全性,成为化妆品、功能性洗涤剂等产品的核心原料研发热点。蛹虫草(Cordyceps militaris)作为我国传统药食同源真菌,因其丰富的活性成分及显著的生理功能,成为近年来食药用菌研究领域的热点之一[1]。现代药理学研究表明,蛹虫草含有虫草素、虫草多糖、甾醇类及氨基酸等多种活性物质,具有免疫调节、抗肿瘤、抗氧化及抗衰老等药理作用[2]。随着天然产物开发需求的增长,从蛹虫草中挖掘高活性功能成分成为研究重点。其中,生物活性肽作为一类由氨基酸通过肽键连接而成的小分子物质,因其易吸收、安全性高且生物活性多样的特点,在食品添加剂、日化产品、保健品及医药领域展现出广阔的应用前景。生物活性肽作为天然抗氧化剂的重要来源,其抗氧化活性已得到广泛证实[3]。已有研究证实,蛹虫草多肽(Cordyceps militaris polypeptides,CMP)具有显著的抗氧化活性,可通过清除自由基、抑制脂质过氧化及调节抗氧化酶活性等途径发挥作用,对缓解氧化应激相关疾病具有重要意义[4-6]。另外,蛹虫草蛋白质含量高,且氨基酸组成均衡,具备制备高活性多肽的良好物质基础[7]。目前,关于蛹虫草多肽的研究多集中于提取工艺优化及初步活性筛选,而针对酶解法制备蛹虫草多肽的系统研究仍较为薄弱。酶解法作为制备生物活性肽的常用技术,具有反应条件温和、产物活性保留好及专一性强等优势,其酶种类选择、酶解参数设置直接影响多肽的得率及活性[8]。现有研究中,蛹虫草多肽的酶解制备多采用单一蛋白酶,且对酶解工艺参数的优化不够系统,导致多肽得率及抗氧化活性未能达到理想水平。例如,龚频等人[9]研究表明,碱性蛋白酶对蛹虫草蛋白的水解程度明显高于胃蛋白酶和木瓜蛋白酶。赵琳琳等人[4]研究表明,木瓜蛋白酶提取出的多肽活性优于中性蛋白酶。
氧化应激是机体活性氧(ROS)产生与清除失衡导致的病理过程,是导致皮肤老化、产品配方失效的关键因素。寻找高效、安全的天然抗氧化剂成为日化原料创新的重要方向。目前,关于蛹虫草多肽抗氧化活性的研究多局限于体外自由基清除实验,缺乏对细胞水平及动物模型的深入研究,无法全面反映其抗氧化效果和机制。因此,系统开展酶解法制备蛹虫草多肽的工艺优化,明确其抗氧化活性及作用机制,可为蛹虫草功能性多肽的开发利用提供理论依据和技术支撑。酶解法制备多肽的关键在于蛋白酶的选择及工艺参数的优化[10]。常用的蛋白酶包括中性蛋白酶、碱性蛋白酶、胰蛋白酶及复合蛋白酶等,不同蛋白酶的酶切位点差异会导致产物多肽的分子量分布、氨基酸组成及生物活性显著不同[11]。中性蛋白酶的最适pH为6.0~8.0,酶切位点广泛,可水解多种氨基酸之间肽键,反应条件温和,能保留产物生物活性,是多肽制备的常用酶类[12]。碱性蛋白酶的最适pH为9.0~11.0[12],偏好水解脂肪族氨基酸组成的肽键,对小分子肽段分解效率高。胰蛋白酶的最适pH为7.5~8.5,专一性水解精氨酸和赖氨酸羧基端的肽键,水解产物均一性强,常用于多肽定向制备及结构分析[13]。复合蛋白酶由两种及以上不同类型蛋白酶复配而成,可通过协同作用互补酶切位点,提升蛋白水解程度与多肽得率,兼顾效率与活性。已有研究表明,复合酶解通过协同作用可提高多肽得率并增强其生物活性[14],但关于蛹虫草多肽的复合酶解研究尚未见深入报道。此外,酶解温度、pH值、酶解时间等参数对多肽活性的影响机制仍需系统解析。
目前,蛹虫草提取虫草素后的剩余物的常规处理方式为烘干储存后作为废料丢弃,不仅造成资源浪费,还增加环保压力。该剩余物主要成分包括未被充分利用的蛹虫草蛋白、膳食纤维及少量残留活性成分[15, 16]。基于此,本研究拟以蛹虫草提取虫草素后的剩余物为原料,通过酶解工艺制备高活性多肽。本研究通过比较不同蛋白酶及复合酶的酶解效果,旨在优化蛹虫草多肽的制备方法。另外,通过体外抗氧化实验评价其清除DPPH自由基、ABTS自由基及羟基自由基的能力,并结合细胞实验探究其对氧化应激损伤细胞的保护作用和机制,从而为其开发天然抗氧化日化原料提供工艺参数与应用依据。
1 实验部分
1. 1 主要材料、试剂与仪器
1. 1. 1 实验材料
蛹虫草提取虫草素后的剩余物,上海酶研生物科技有限公司;蜗牛酶、胃蛋白酶、木瓜蛋白酶、碱性蛋白酶、维生素C( VC)、维生素E( VE),北京康瑞纳生物科技有限公司;1, 1-二苯基-2-三硝基苯肼(DPPH,纯度≥98%),Sigma-Aldrich公司;2, 2'-联氮-双-( 3-乙基苯并噻唑啉-6-磺酸)二铵盐(ABTS,纯度≥98%),上海源叶生物科技有限公司;过硫酸钾、水杨酸、七水合硫酸亚铁(FeSO4·7H2O)、30%过氧化氢(H2O2)、无水乙醇,国药集团化学试剂有限公司;DMEM高糖培养基、胎牛血清(FBS)、青霉素-链霉素双抗、0.25%胰蛋白酶-EDTA,美国Gibco公司;CCK-8试剂盒、活性氧(ROS)检测试剂盒、超氧化物歧化酶(SOD)检测试剂盒(WST-1法)、过氧化氢酶(CAT)检测试剂盒(钼酸铵法)、谷胱甘肽过氧化物酶(GSH-Px)检测试剂盒(比色法)、丙二醛(MDA)检测试剂盒(TBA法),南京建成生物工程研究所;BCA蛋白定量试剂盒、细胞核蛋白提取试剂盒、RIPA缓冲液,上海碧云天生物技术有限公司;核因子红细胞2相关因子2( Nrf2)、Kelch样ECH相关蛋白1(Keap1)、Lamin B1和β-actin一抗及辣根过氧化物酶标记二抗,英国Abcam公司。
1. 1. 2 实验细胞
永生化人角质形成细胞(Ha C a T细胞),美国ATCC。HaCaT细胞用含10% FBS、1%青霉素-链霉素的DMEM高糖培养基,置于37 ℃、5% CO2、饱和湿度培养箱中培养。待细胞融合度达80%~90%时,0.25%胰蛋白酶消化传代。
1. 1. 3 实验仪器
Multiskan FC型酶标仪、HERAcell150i型CO2培养箱,赛默飞世尔科技有限公司;Centrifuge5810R型高速离心机,德国Eppendorf公司;KQ-500DE型超声波清洗器,昆山市超声仪器有限公司;CK-4007GD型恒温水浴锅,宁波新芝生物科技股份有限公司;K9840型凯氏定氮仪,济南海能仪器股份有限公司;PB-10型pH计,德国Sartorius公司;U9-801AB型UVB紫外线治疗仪,武汉金鑫谷科技发展有限公司;IX73型荧光显微镜,日本Olympus公司。
1. 2 实验方法
1. 2. 1 蛹虫草多肽的制备
1)原料选择与预处理
以蛹虫草提取虫草素后的剩余物为原料,去除可见杂质后,用高速粉碎机粉碎至60目,备用。脱脂处理:按1∶15( g/mL)的料液比向粉碎后的剩余物中加入90%乙醇水溶液,在30 ℃下搅拌30 min,以4 000 r/min离心10 min,弃上清液(去除脂类杂质,优化后续酶解效率);将沉淀用蒸馏水洗涤2次,真空烘干(60 ℃,2 h)备用。
2)蛋白提取与超声辅助处理
取10 g脱脂后的剩余物粉末置于超声反应釜中,加入200 mL蒸馏水(料液比1∶20),在功率300 W、温度50 ℃下超声破碎1.5 h;随后加入0.15 mol/L氢氧化钠溶液调节pH至9.0,在60 ℃恒温搅拌提取2.5 h;提取完成后,抽取上清液,用1 mol/L的盐酸调节pH至等电点,静置一段时间,然后以8 000 r/min离心20 min,弃上清液,沉淀即为蛋白,用去离子水溶解蛋白。采用凯氏定氮法测定蛋白质含量。
3) 复合酶解方法
在现有文献基础上对酶解方法进行优化[15-17]:第一步:蜗牛酶预处理。将脱脂后的蛹虫草剩余物蛋白提取液用1 mol/L盐酸调pH至5.5~6.0,加入0.08%蜗牛酶,在37 ℃下恒温搅拌酶解2 h,搅拌速率150 r/min。第二步:酸性蛋白酶初步水解。向第一步酶解液中继续滴加1 mol/L盐酸,调pH至2.0,加入1.0%胃蛋白酶,37 ℃恒温搅拌酶解1.5 h。第三步:木瓜蛋白酶协同水解。用1 mol/L氢氧化钠缓慢调节第二步酶解液pH至7.0,加入0.8%木瓜蛋白酶,温度维持在50 ℃,搅拌酶解1 h。第四步:碱性蛋白酶深度水解。继续用1 mol/L氢氧化钠调pH至11,加入5.0%碱性蛋白酶,升温至55 ℃,搅拌速率提升至200 r/min,酶解4 h。第五步:酶灭活。酶解结束后,将体系升温至95 ℃,保持10 min,同时搅拌,自然冷却至室温后抽滤,取上清液进入脱色阶段。
4) 脱色处理
将酶解液冷却至室温,用1 mol/L盐酸调pH至3.5,加入0.6%活性炭和15%醋酸溶液,在35 ℃下搅拌脱色40 min;随后以4 000 r/min离心10 min,取上清液,用0.22 μm微滤膜过滤,得到脱色澄清液。
5) 分离纯化与干燥
层析纯化:将SephadexG-25凝胶装柱(柱高80 cm,内径2.5 cm),用蒸馏水平衡柱子后,以上样量2.0 mL、流速1.2 mL/min加载脱色澄清液,用蒸馏水洗脱,收集多肽流出液。浓缩干燥:将收集的多肽液用旋转蒸发仪(50 ℃,0.08 MPa)浓缩至原体积的1/5,随后采用喷雾干燥机(进风温度180 ℃,出风温度80 ℃,进料速度10 mL/min)干燥,得到蛹虫草多肽粉末。通过分子量分布分析法(Tricine-SDS-PAGE电泳法)确定是否为多肽。采用16.5%分离胶+4%浓缩胶的电泳体系,以1.4~20 kDa低分子量标准蛋白为参照。电泳结果显示,酶解产物的条带集中分布于1~5 kDa区间,无明显大分子蛋白条带(>10 kDa),符合多肽“小分子肽段(通常<10 kDa)”的核心特征。
6) 多肽指数(TCA-SN)测定
采用TCA-SN法[16]测定酶解液多肽指数。1)总氮含量测定:取1.0 mL未加TCA的酶解液,采用凯氏定氮仪测定总氮含量。2)可溶性氮含量测定:取2.0 mL酶解液,加入2.0 mL 10% TCA溶液,涡旋混匀后4 ℃静置30 min,以8 000 r/min离心15 min,取上清液1.0 mL,采用凯氏定氮仪测定上清液中的可溶性氮含量。3)计算公式:TCA-SN=可溶性氮含量/总氮含量×100%。
1. 2. 2 自由基清除能力测定
1)DPPH自由基清除能力测定
精确称取19.7 mg DPPH,用无水乙醇溶解并定容至500 mL,配制0.1 mmol/L DPPH乙醇溶液,避光4 ℃冷藏,24 h内使用。取2 mL梯度浓度蛹虫草多肽溶液(0.1,0.2,0.5,1.0,2.0,4.0 mg/mL,蒸馏水配制)于具塞玻璃试管中,加入2 mL DPPH乙醇溶液,涡旋混匀后避光室温反应30 min。在517 nm波长处测定2 mL多肽溶液与2 mL DPPH乙醇混合液的吸光度(A1);同时测定2 mL多肽溶液与2 mL无水乙醇混合液的吸光度(A2)及2 mL蒸馏水与2 mLDPPH溶液混合液的吸光度(A0)。每组6次平行,清除率 =[ 1-(A1-A2/A0)] ×100%。
2)ABTS自由基清除能力测定
将7 mmol/L ABTS溶液与2.45 mmol/L过硫酸钾溶液等体积混合,避光室温静置12~16 h制备ABTS自由基储备液;使用前用无水乙醇稀释至734 nm处吸光度为0.70±0.02,即ABTS工作液。向96孔板中加入100 μL梯度浓度多肽溶液(0.1,0.2,0.5,1.0,2.0,4.0 mg/mL),再加入100 μL ABTS工作液,混匀后避光反应10 min。在734 nm波长处测定100 μL多肽溶液与100 μL ABTS工作液混合液的吸光度(B1);同时测定100 μL多肽溶液与100 μL无水乙醇混合液的吸光度(B2)及100 μL蒸馏水与100 μL ABTS工作液混合液的吸光度(B0)。每组6次平行,清除率 =[ 1-( B1-B2/B0)] ×100%。
3)羟基自由基(·OH)清除能力测定
反应体系总体积5 mL,依次加入1 mL 6 mmol/L FeSO4溶液、1 mL 6 mmol/L水杨酸-乙醇溶液、1 mL梯度浓度多肽溶液(0.1,0.2,0.5,1.0,2.0,4.0 mg/mL),最后加入1 mL 6 mmol/L H2O2启动反应,37 ℃恒温水浴振荡反应30 min。在510 nm波长处测定1 mL多肽溶液与1 mL H2O2混合液的吸光度(C1);同时测定1 mL多肽溶液与1 mL蒸馏水混合液的吸光度(C2)及1 mL蒸馏水与1 mL H2O2混合液的吸光度(C0)。每组6次平行,清除率 =[ 1-( C1-C2/C0)] ×100%。
1. 2. 3 体外细胞抗氧化保护作用测定
1)细胞分组与处理
实验设5组,空白组(C)、模型组(M)、蛹虫草多肽低/中/高剂量组( CMP-L/M/H)、阳性对照维生素C组( VC),每组6个复孔。除C组外,其他组HaCaT细胞均进行UVB照射,诱导氧化应激。C组和M组用正常培养基培养,CMP-L/M/H组分别用0.5,1.0,2.0 mg/mL蛹虫草多肽预处理24 h,VC组用0.02 mg/mL VC预处理24 h,然后再用UVB照射。UVB照射方法如下:采用U9-801AB型UVB紫外线治疗仪作为照射光源,调节光源与细胞层面的垂直距离为15 cm。参考文献方法[18],将UVB照射剂量确定为30 mJ/cm2。UVB照射24 h后进行后续指标检测。
2)蛹虫草多肽对HaCaT细胞活力的影响( CCK-8法)
将HaCaT细胞以5×10⁴个/孔接种于96孔板,培养24 h后弃旧培养基,加入含不同质量浓度蛹虫草多肽(0.5,1.0,2.0 mg/mL)的无血清DMEM培养基,培养24 h。多肽预处理24 h后,除C组外,其余组用UVB照射。照射24 h后,每孔加入10 μL CCK-8溶液37 ℃孵育4 h,在450 nm测定吸光度并计算相对细胞活力。
3)细胞内活性氧(ROS)水平测定(DCFH-DA荧光探针法)
将HaCaT细胞以2×10⁵个/孔接种于6孔板,培养24 h后按前述分组处理。多肽预处理24 h后,除C组外,其余组用UVB照射。照射24 h后,弃培养基,PBS洗涤细胞2次,加入10 μmol/ LDCFH-DA荧光探针,37 ℃避光孵育30 min,PBS洗涤3次去除未负载探针。荧光显微镜下观察细胞内荧光分布,酶标仪测定激发波长488 nm、发射波长525 nm处的荧光强度,以空白对照组荧光强度为基准,计算各组ROS相对荧光强度。
4)细胞内抗氧化酶活性及MDA含量测定
将HaCaT细胞以5×10⁵个/孔接种于6孔板,按前述分组处理后,收集细胞。PBS洗涤2次,加入预冷的RIPA裂解液(含蛋白酶抑制剂),冰浴超声破碎细胞(功率200 W,工作3 s,间隔5 s,共10次),4 ℃、12 000 r/min离心15 min,取上清液即为细胞总蛋白提取液。BCA法测定蛋白浓度后,按试剂盒说明书分别检测SOD、CAT、GSH-Px活性以及MDA含量,结果均以“U/(mg protein)”(酶活性)或“nmol/(mg protein)”(MDA含量)表示。
5)细胞内Nrf2/Keap1通路活性测定
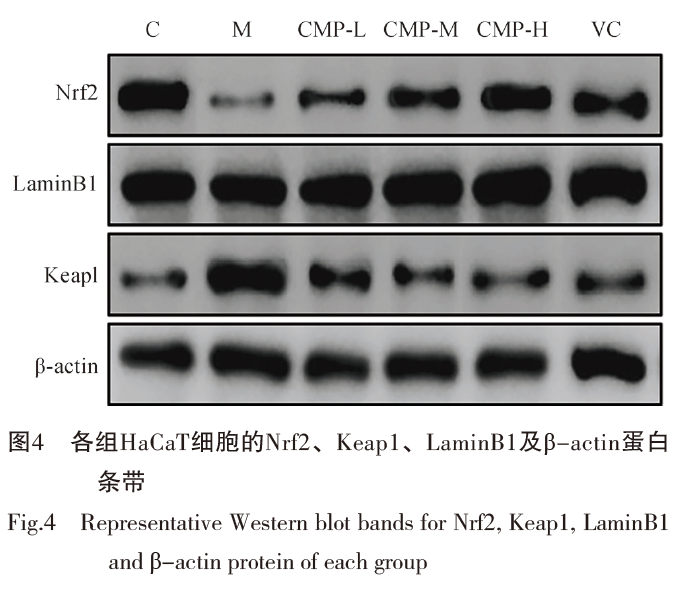
采用Western blot测定细胞内Nrf2/Keap1通路活性。将HaCaT细胞用细胞核蛋白提取试剂盒或RIPA缓冲液制备蛋白质提取物,随后将提取物在10% SDS-PAGE凝胶中进行电泳分离,再将分离后的蛋白从凝胶转移至硝酸纤维素膜上。室温条件下,用5%脱脂牛奶对膜进行1.5 h封闭处理。封闭后,将膜分别与Nrf2、Keap1、LaminB1及β-actin一抗(1∶1 000稀释)在4 ℃环境下孵育过夜。之后将膜与辣根过氧化物酶标记的二抗(1∶1 000稀释)在室温下孵育1 h。采用ECL法对蛋白质条带进行显影,运用Image J软件分析各条带的灰度值,并以LaminB1和β-actin作为内参蛋白,计算目标蛋白的相对表达水平。
1. 3 数据分析
所有实验数据以“平均值±标准差”表示,采用SPSS26.0统计软件进行单因素方差分析(One-way ANOVA),组间多重比较采用LSD-t检验,P<0.05为差异具有统计学意义。
2 结果与讨论
2. 1 蛹虫草多肽酶解工艺优化
本研究以蛹虫草提取虫草素后的剩余物为原料,避免原材浪费,同时可降低原料成本。采用90%乙醇进行脱脂,可有效去除蛹虫草剩余物中的脂类杂质,避免脂类包裹蛋白质底物阻碍酶与底物的接触,同时减少脂类对脱色、纯化步骤的干扰,降低杂质残留。酶解法是制备蛹虫草多肽常用方法。
本研究采用碱提酸沉法提取蛹虫草蛋白,测得的蛹虫草蛋白得率为9.22%,与前人文献报道基本一致[9, 19]。本研究优化了蛹虫草多肽酶解工艺,未进行酶解处理的蛹虫草多肽指数为14.68%±1.04%,结果显示不同酶解方法[碱性蛋白酶(66.44%±7.61%)、蜗牛酶+碱性蛋白酶(73.91%±4.44%)、蜗牛酶+胃蛋白酶+碱性蛋白酶(78.94%±8.72%)、蜗牛酶+胃蛋白酶+木瓜蛋白酶+碱性蛋白酶(84.25%±6.15%)]对蛹虫草多肽指数具有显著影响(F=123.417,P<0.001)。与单独应用碱性蛋白酶相比,蜗牛酶+碱性蛋白酶处理将多肽指数提高了11.25%,蜗牛酶+胃蛋白酶+碱性蛋白酶处理进一步提高了6.80%,蜗牛酶+胃蛋白酶+木瓜蛋白酶+碱性蛋白酶处理进一步提高了6.72%。上述结果充分说明本研究中的四步酶解法具有较佳的蛹虫草多肽制备效果。徐鸿雁等[16]研究表明,与碱性蛋白酶单独处理相比,合酶(蜗牛酶/纤维素酶+碱性蛋白酶)可使多肽指数提升8%以上,支持本研究结果。本方法测得的多肽指数高达84.25%,显著高于其他文献[18]。分析其原因可能包括以下方面:蜗牛酶是复合酶(含纤维素酶、果胶酶等20余种酶),可降解果胶、半纤维素等杂质,相比单独使用某一种辅助酶可提升细胞壁破碎率,更充分释放内部蛋白质,为后续酶解提供充足底物。胃蛋白酶最适pH为1.5~3.5,在酸性条件下可优先水解蛋白质的芳香族氨基酸肽键,将大分子蛋白初步切割为5~10 kDa的肽段,加入胃蛋白酶可避免直接用碱性蛋白酶时“底物过大导致酶接触不充分”的问题。木瓜蛋白酶最适pH为6.0~7.5,中性条件下可水解碱性蛋白酶难以作用的脂肪族氨基酸肽键,补充水解位点,使肽段分布更均匀。碱性蛋白酶最适pH为9.0~11.0,在碱性环境下对小分子肽段的分解效率最高,是制备蛹虫草多肽的最佳酶类。传统“混合酶一次性添加”会因pH、温度不匹配导致部分酶失活,本方案通过pH梯度调节,使每种酶在各自最优条件下发挥作用。另外,本方案还可缩短酶解时长,其他文献报道的酶解时间通常需12 h以上[9, 16],而本方案四步连续酶解总耗时仅8.5 h。
2. 2 蛹虫草多肽的自由基清除能力测定
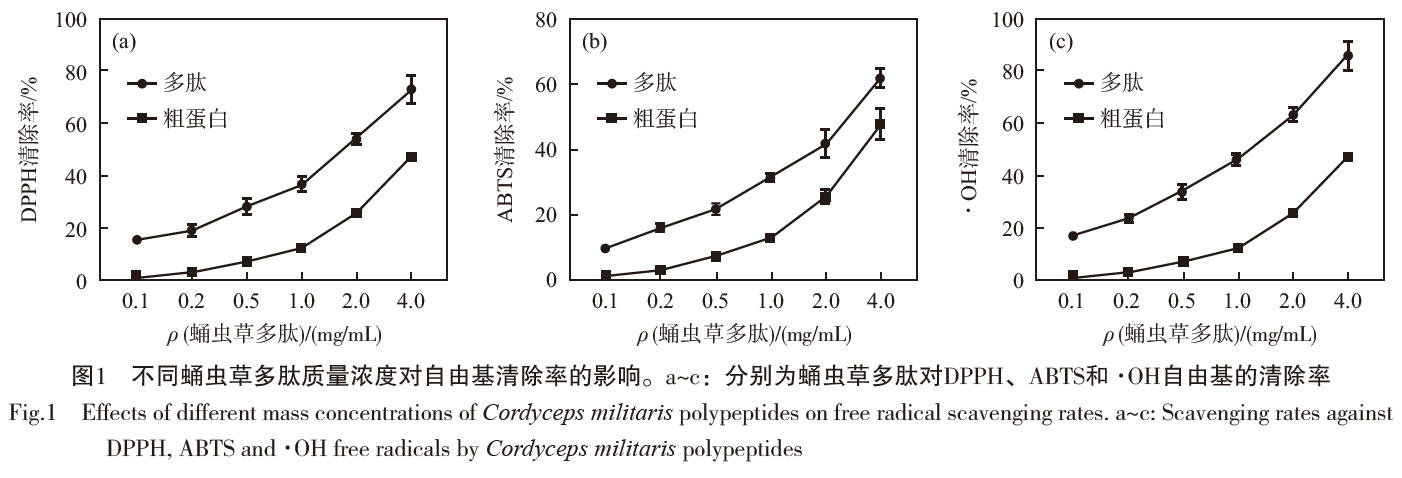
不同质量浓度下蛹虫草多肽对DPPH、ABT S和·OH自由基的清除率均高于粗蛋白(图1)。进一步计算IC50,结果显示,蛹虫草多肽对DPPH、ABTS和·OH自由基的IC50依次为1.67,3.02和1.49 mg/mL。阳性对照VC对DPPH、ABTS和·OH自由基的IC50依次为0.058,0.094和0.122 mg/mL。表明酶解制备的多肽具有更优异的体外抗氧化活性。该结果与龚频等[9]的研究一致,该研究通过铁氰化钾还原法测总还原力、DPPH法测自由基清除率,结果显示蛹虫草多肽的总还原力和DPPH清除率显著高于粗蛋白,体外抗氧化活性提升2~4倍。本研究结果与酶解工艺的优化密切相关,采用“蜗牛酶预处理+多酶分步水解”的组合工艺,相较于单一酶解,多酶协同作用可更充分断裂蛹虫草蛋白的肽键,释放更多富含疏水性氨基酸(如组氨酸、酪氨酸)的小分子肽段。这类肽段不仅可通过提供氢质子直接中和自由基,其侧链基团还能与自由基形成稳定的电子共轭体系,从而增强清除效果。从自由基类型差异来看,多肽对·OH的清除能力最强(IC50最低),对ABTS的清除能力相对较弱。这可能与不同自由基的化学特性有关。·OH作为活性最强的氧自由基,其反应性极高,易与多肽中的氨基、羟基等基团快速结合;而ABTS自由基为人工合成的水溶性阳离子自由基,其清除更依赖肽段的电荷特性及空间结构,本研究制备的多肽可能在电荷匹配性上与ABTS的亲和力稍弱。
2. 3 蛹虫草多肽对UVB诱导的HaCaT细胞活力的影响
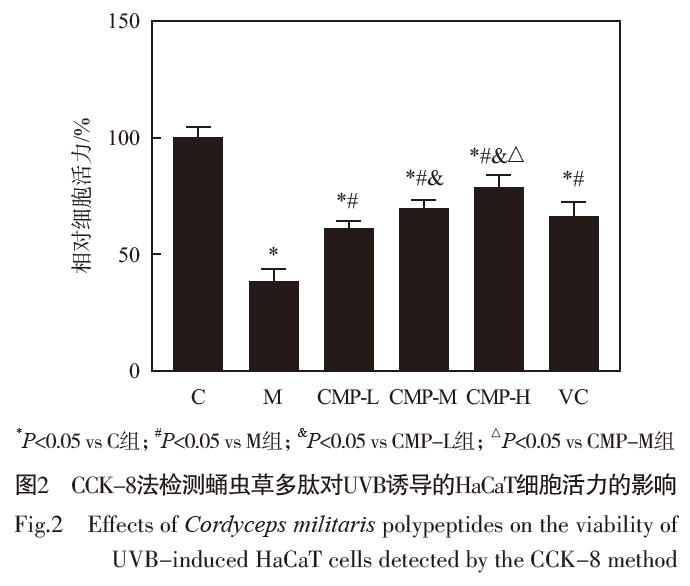
CCK-8法测得的C组、M组、CMP-L/M/H组和VC组HaCaT细胞的相对细胞活力分别为100.00%±4.86%,38.58%±5.32%,60.71%±3.96%,69.81%±3.73%,79.20%±4.85%,66.54%±6.02%(F=105.177,P<0.001)。与C组比较,M组的相对细胞活力降低(P<0.05)。与M组比较,CMP-L/M/H组和VC组的相对细胞活力均升高,且有剂量依赖性(P<0.05)。见图2。CCK-8检测结果表明,UVB照射显著降低HaCaT细胞活力,多肽对UVB诱导的角质形成细胞损伤具有明确的保护作用。UVB作为中波紫外线,可直接损伤细胞DNA[20, 21],同时激活氧化应激通路[22],导致线粒体功能紊乱及细胞凋亡相关蛋白表达上调,最终降低细胞活力。本研究中多肽的保护作用,可能与两方面机制相关:一方面,前文已证实多肽具有较强的自由基清除能力,可直接减少UVB诱导的ROS积累,减轻氧化应激对细胞膜及细胞器的损伤;另一方面,多肽可能通过调节细胞周期进程,促进损伤细胞的DNA修复[23]。
2. 4 蛹虫草多肽对UVB诱导的HaCaT细胞ROS水平的影响
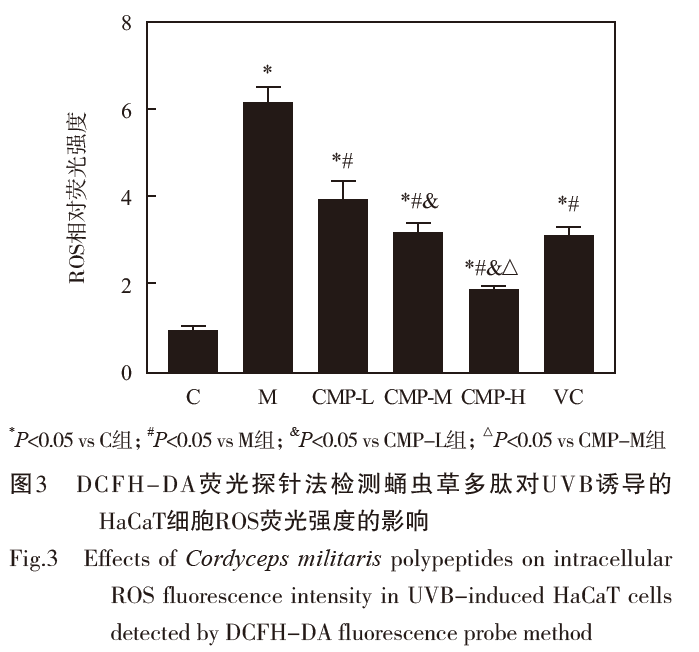
DCFH-DA荧光探针法测得的C组、M组、CMP-L/M/H组和VC组HaCaT细胞的ROS相对荧光强度分别为1.00±0.06、6.17±0.38、3.97±0.41、3.20±0.22、1.90±0.06、3.17±0.18( F=285.215,P<0.001)。与C组比较,M组的ROS相对荧光强度升高(P<0.05)。与M组比较,CMP-L/M/H组和VC组的ROS相对荧光强度均降低,且有剂量依赖性(P<0.05)。见图3。这进一步证实了多肽的抗氧化保护作用。UVB诱导ROS过量产生的核心机制在于:其可激活细胞膜上的NADPH氧化酶,同时抑制线粒体呼吸链复合物活性,导致超氧阴离子、过氧化氢等ROS大量堆积,而ROS作为关键信号分子,又会进一步放大氧化应激级联反应,诱发脂质过氧化、蛋白质氧化及DNA损伤[24, 25]。本研究中多肽对ROS的清除作用,既与其体外直接清除自由基的能力一致,也可能通过调节细胞内抗氧化系统间接实现,后续实验中多肽对SOD、CAT等酶活性的提升,也佐证了这一协同机制。
2. 5 蛹虫草多肽对UVB诱导的HaCaT细胞抗氧化酶活性及MDA含量的影响
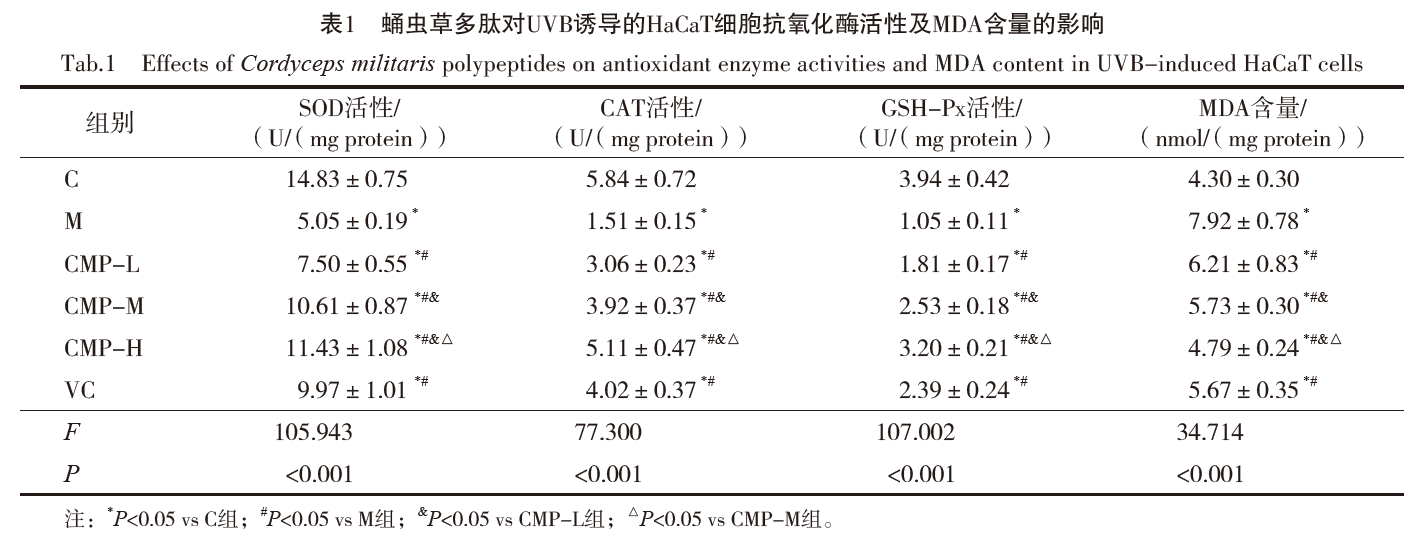
与C组比较,M组的SOD、CAT和GSH-Px活性降低,MDA含量升高(P<0.05)。与M组比较,CMP-L/M/H组和VC组的SOD、CAT和GSH-Px活性升高,MDA含量降低,且有剂量依赖性(P<0.05)。见表1。表明多肽可通过增强细胞内源性抗氧化能力、减轻脂质过氧化损伤发挥保护作用。SOD作为清除超氧阴离子的关键酶,可将其转化为过氧化氢;CAT和GSH-Px则进一步将过氧化氢分解为水,三者协同构成细胞内的ROS清除网络。UVB诱导的ROS过量产生会导致抗氧化酶的氧化失活,同时抑制其基因表达,而本研究中多肽可恢复这三种酶的活性,推测其可能通过上调酶的转录水平或激活酶的活性中心实现。此外,MDA含量的降低直接反映了脂质过氧化程度的减轻,这与ROS水平的下降及抗氧化酶活性的提升形成逻辑闭环,多肽通过减少ROS积累、增强酶促清除,最终减少细胞膜脂质的氧化损伤,维持细胞结构完整性。
2. 6 蛹虫草多肽对UVB诱导的HaCaT细胞Nrf2/Keap1通路活性的影响
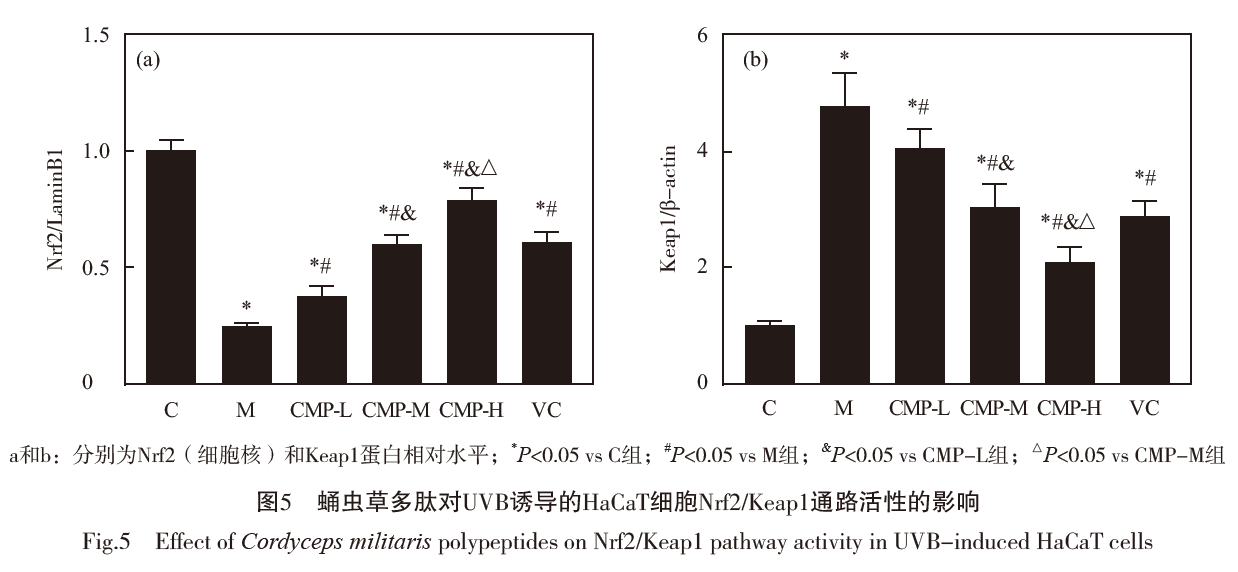
C组、M组、CMP-L/M/H组和VC组HaCaT细胞的Nrf2(细胞核)蛋白相对水平分别为1.00±0.05、0.24±0.02、0.37±0.05、0.60±0.04、0.80±0.06、0.60±0.04( F=215.397,P<0.001),Keap1蛋白相对水平分别为1.00±0.04、4.77±0.57、4.03±0.32、3.04±0.38、2.08±0.25、2.89±0.24( F=94.306,P<0.001)。与C组比较,M组的Nrf2(细胞核)蛋白水平降低,Keap1蛋白水平升高(P<0.05)。与M组比较,CMP-L/M/H组和VC组的Nrf2(细胞核)蛋白水平升高,Keap1蛋白水平降低,且有剂量依赖性(P<0.05)。见图4和图5。表明多肽可能通过激活Nrf2/Keap1通路调控细胞抗氧化反应。Nrf2/Keap1通路是细胞应对氧化应激的核心调控通路[26]:正常状态下,Nrf2与Keap1结合于细胞质中,处于失活状态;当受到氧化应激刺激时,Keap1发生泛素化降解,Nrf2进入细胞核并结合抗氧化反应元件(ARE),启动SOD、CAT、GSH-Px等抗氧化酶的基因表达[27]。本研究中,蛹虫草多肽可降低Keap1水平、促进Nrf2入核,从而上调下游抗氧化酶的活性,这与前文抗氧化酶活性的检测结果高度一致。多项研究证实,激活Nrf2/Keap1通路活性是减轻UVB诱导的皮肤氧化损伤的有效途径[26-28],本研究证实蛹虫草多肽减轻UVB诱导的HaCaT细胞氧化损伤的机制与激活Nrf2/Keap1通路密切相关。
3 结论
本研究以蛹虫草提取虫草素后的剩余物为原料,采用碱提酸沉法提取蛋白后,通过“蜗牛酶预处理-酸性蛋白酶初步水解-木瓜蛋白酶协同水解-碱性蛋白酶深度水解”的分步酶解工艺制备蛹虫草多肽,其中四酶组合工艺的肽得率最高(84.25%±6.15%)。体外抗氧化实验表明,蛹虫草多肽对DPPH、ABTS、·OH自由基均具有清除能力,IC50依次为1.67,3.02,1.49 mg/mL,且相同质量浓度下的清除效果显著优于粗蛋白。细胞实验显示,UVB照射可显著降低HaCaT细胞活力、升高ROS水平、抑制SOD/CAT/GSH-Px活性、增加MDA含量,并下调Nrf2核转位及上调Keap1表达;而蛹虫草多肽预处理可剂量依赖性逆转上述变化,其中2.0 mg/mL高剂量组可使细胞活力恢复至79.20%±4.85%,ROS相对荧光强度降至1.90±0.06,同时显著激活Nrf2/Keap1通路。综上,优化的四酶分步酶解工艺可高效制备蛹虫草多肽,该多肽通过直接清除自由基及激活Nrf2/Keap1通路增强细胞内源性抗氧化能力,从而缓解UVB诱导的HaCaT细胞氧化损伤。本研究为蛹虫草剩余物的高值化利用提供了可行途径,也为天然抗氧化多肽在日用化学品中的开发应用提供了实验依据。
参考文献:
[ 1 ] 秦令祥, 丁昱婵, 赵俊芳, 等. 蛹虫草多糖提取工艺优化及其抗菌、抗氧化活性[ J] . 食品研究与开发, 2023, 44( 11) : 159-165.
[ 2 ] Das G, Shin H S, Leyva-Gómez G, et al. Cordyceps spp.: A review on its immune-stimulatory and other biological potentials[ J] . Front Pharmacol., 2020, 11: 602364.
[ 3 ] Hou H, Wang J, Wang J, et al. A review of bioactive peptides:chemical modification, structural characterization and therapeutic applications[ J] . J. Biomed. Nanotechnol., 2020, 16( 12) : 1687-1718.
[ 4 ] 赵琳琳, 张鑫喆, 徐方旭, 等. 蛹虫草多肽的提取及体外抗氧化活性研究[ J] . 山东工业技术, 2018( 19) : 49-51.
[ 5 ] 王千慧, 刘颖, 孙思琪, 等. 两种方法制备的蛹虫草小分子肽分子量分布及体外抗氧化能力对比研究[ J] . 食品与药品, 2024, 26(2) : 175-178.
[ 6 ] 蔡琦, 闫魏魏, 王少坤, 等. 蛹虫草多肽对大鼠急性酒精性肝损伤的保护作用[ J] . 临床肝胆病杂志, 2016, 32( 4) : 669-672.
[ 7 ] 都兴范, 李军, 米锐, 等. 蛹虫草和冬虫夏草主要活性成分含量比较[ J] . 食用菌, 2010, 6: 61-62.
[ 8 ] 张慧荣, 郭苗苗, 陈晨, 等. 三种豆类植物多肽的制备工艺及其活性研究[ J] . 日用化学工业( 中英文) , 2023, 53( 4) : 423-429.
[ 9 ] 龚频, 岳山, 王小娟, 等. 酶法制备蛹虫草多肽工艺优化及其体外抗氧化活性研究[ J] . 陕西科技大学学报, 2023, 41( 5) : 50-56.
[10] 张红玉, 李会珍, 张志军, 等. 紫苏粕酶解工艺优化及其多肽抗氧化稳定性[ J] . 食品研究与开发, 2024, 45( 6) : 157-166.
[11] Habinshuti I, Nsengumuremyi D, Muhoza B, et al. Recent and novel processing technologies coupled with enzymatic hydrolysis to enhance the production of antioxidant peptides from food proteins: A review[J] . Food Chem., 2023, 423: 136313.
[12] 汤鸣强, 郑挺, 曾小芳, 等. 酿造酱油米曲霉产中性蛋白酶提取与酶学性质研究[ J] . 中国调味品, 2008( 2) : 38-40, 50.
[13] 郝毅, 章杰, 何泽超. 以壳聚糖为载体亲和层析胰蛋白酶[ J] . 天然产物研究与开发, 2006, 18( 6) : 900-904.
[14] 江含秀, 曾芳, 邬晓霞, 等. 不同品种苦荞蛋白的复合酶解及其多肽抗氧化活性[ J] . 食品研究与开发, 2023, 44( 9) : 43-51.
[15] 雷燕妮, 张小斌, 陈书存, 等. 蛹虫草菌渣中虫草素、多糖、多肽综合提取分离的工艺研究[ J] . 陕西农业科学, 2021, 67( 9) : 32-37.
[16] 徐鸿雁, 孟胜楠, 张疏雨, 等. 蛹虫草HWM剩余物蛋白酶解工艺研究[ J] . 中国食品学报, 2014, 14( 4) : 127-135.
[17] 郭尚, 徐莉娜, 李艳婷, 等. 蚕蛹虫草生物活性肽的制备及其性能分析[ J] . 精细化工, 2022, 39( 12) : 2481-2491.
[18] 曹波, 牛聪, 卢涛, 等. 五味子乙素对UVB辐射诱导HaCat细胞凋亡的抑制作用及其机制[ J] . 中国药理学通报, 2014( 4) : 523-526,527.
[19] 苗信凯. 蛹虫草多肽制备分离及功能口服液加工工艺研究[ D] .天津: 天津科技大学, 2015.
[20] Cadet J, Douki T, Ravanat J L. Oxidatively generated damage to cellular DNA by UVB and UVA radiation[ J] . Photochem Photobiol, 2015, 91( 1) : 140-155.
[21] Yarosh D B, Boumakis S, Brown A B, et al. Measurement of UVB-Induced DNA damage and its consequences in models of immunosuppression[ J] . Methods, 2002, 28( 1) : 55-62.
[22] 孙琳, 张曼. 白花泡桐叶片提取物的抗皮肤光老化作用研究[ J] .日用化学工业( 中英文) , 2024, 54( 9) : 1092-1098.
[23] 顾宇翔, 宋聿文, 范立强, 等. 虫草减轻自由基引起的细胞氧化损伤[ J] . 食品科学, 2008, 29( 2) : 387-390.
[24] Mohania D, Chandel S, Kumar P, et al. Ultraviolet radiations: Skin defense-damage mechanism[ J] . Adv. Exp. Med. Biol., 2017, 996:71-87.
[25] Solano F. Photoprotection and skin pigmentation: melanin-related molecules and some other new agents obtained from natural sources[J] . Molecules, 2020, 25( 7) : 1537.
[26] Feng G, Chen Q, Liu J, et al. A non-bactericidal cathelicidin with antioxidant properties ameliorates UVB-induced mouse skin photoaging via intracellular ROS scavenging and Keap1/Nrf2 pathway activation[ J] . Free Radic. Biol. Med., 2024, 224: 144-161.
[27] Ben Yehuda Greenwald M, Frušić-Zlotkin M, Soroka Y, et al. Curcumin protects skin against UVB-induced cytotoxicity via the Keap1-Nrf2 pathway: The use of a microemulsion delivery system[J] . Oxid. Med. Cell Longev., 2017: 5205471.
[28] Yuan L, Duan X, Zhang R, et al. Aloe polysaccharide protects skin cells from UVB irradiation through Keap1/Nrf2/ARE signal pathway[J] . J. Dermatolog. Treat., 2020, 31( 3) : 300-308.
(编辑:杨 旭)