一株蝉花的ITS序列分析及产纤溶酶条件的研究
龙良鲲1,梁子豪1,林群英2,胡 毅1,吴文杰1,丁少军1
(1.南京林业大学化学工程学院,江苏南京210037;2.中华全国供销合作总社南京野生植物综合利用研究院,江苏南京210042)
摘要:以新分离的蝉花(Cordyceps cicadae)CC1504为试材,通过真菌核糖体DNA内转录间隔区(ITS)序列分析确定菌株的分类学地位;利用琼脂糖-纤维蛋白平板法测定蝉花产纤溶酶的能力,通过单因素试验确定其液体发酵产纤溶酶的最适碳源和最适氮源;以正交实验优化菌株产纤溶酶的培养基组成。结果表明:ITS序列进化树分析确定了该菌株的分类地位为蝉花;该蝉花产纤溶酶的最适碳源为乳糖,产酶水平为248.95U·mL-1,其次是甘油,为198.94U·mL-1;蝉花产纤溶酶的最适氮源为蛋白胨,产酶水平可达240.68U·mL-1,其次是酵母膏,为89.23U·mL-1;获得的最佳培养基碳氮源组成为:乳糖10g·L-1、蛋白胨10g·L-1、酵母膏3g·L-1,可发酵获得的纤溶酶水平达262.05U·mL-1。
关键词:蝉花;纤溶酶;营养条件;液体发酵
中图分类号:S567.3+5
文献标识码:A
文章编号:1001-0009(2018)03-0028-06
第一作者简介:龙良鲲(1978-),男,博士,副教授,现主要从事微生物活性物质等研究工作。E-mail:longlk602@njfu.edu.cn.
责任作者:丁少军(1964-),男,博士,教授,博士生导师,现主要从事微生物酶与生物技术等研究工作。E-mail:dshaojun@hotmail.com.
基金项目:江苏省高校自然科学基金资助项目(15KJB220003);南京林业大学大学生创新训练计划资助项目(2015sjcx033);江苏省大学生科技创新计划资助项目(201610298104X)。
收稿日期:2017-07-18
蝉花(Cordyceps cicadae)俗称大虫草,是蝉若虫感染蝉拟青霉(Paecilomyces cicadae)后形成的虫生真菌,分类学上归入麦角菌科虫草属,主要分布于我国南方各省[1]。据史书记载,蝉花用于治疗“小儿天吊,惊痫,夜啼,心悸”,民间常用来制备药酒[2]。现代药理学研究表明,蝉花可产生多糖、甘露醇、麦角甾醇、腺苷和多球壳菌素等多种活性物质,具有抗疲劳、抗衰老、抗氧化、抗菌、镇静、解热镇痛和免疫调节等多种功效[1-5]。蝉花能够实现规模化人工培养,其作为冬虫夏草的重要替代品,具有巨大的市场开发价值。
不同地理来源的蝉花菌株,其生理特性和药用成分各异[1]。充分认识蝉花的药用活性成分和产生条件,是高效利用这类资源的重要前提。纤溶酶(Fibrinolytic enzymes)是一类广泛存在于动植物及微生物细胞中的能够降解纤维蛋白凝胶的蛋白水解酶。目前,利用天然来源的纤溶酶开发溶栓药物,成为治疗心脑血管疾病的重要途径[6-7]。虫草类真菌能够产生纤溶酶,如蛹虫草(Cordyceps militaris)在液体发酵条件下能够产生多种纤溶酶组分[8-10]。但对蝉花产纤溶酶的研究尚鲜见报道。该试验对筛选到的1株蝉花产纤溶酶的条件进行研究,以期为抗血栓药物的研制提供新的生物材料。
1 材料与方法
1.1 试验材料
1.1.1 菌种与试剂
蝉花菌株CC1504以野生鲜蝉花子实体(采集地为贵州省雷公山)为材料分离获得。该菌株接种于PPDA培养基(马铃薯200g·L-1、葡萄糖20g·L-1、蛋白胨5g·L-1、琼脂20g·L-1,自然pH),25℃培养14d,4℃冰箱保存。植物基因组DNA提取试剂盒及分子生物学试剂为北京全式金生物技术公司产品;琼脂糖为上海生物工程有限公司产品;凝血酶、尿激酶和牛血纤维蛋白原均购于上海经科化学科技有限公司;其它试剂为国产分析纯。
1.1.2 液体菌种
取100mL YPD培养基(葡萄糖20g·L-1,蛋白胨8g·L-1,酵母浸膏1g·L-1,KH2PO41g·L-1,MgSO4·7H2O 0.5g·L-1,pH 6.5)装入250mL三角瓶,灭菌处理。将斜面培养的蝉花菌种接入培养基中,25 ℃、160r·min-1振荡培养4d,可用于液体发酵的种子液。
1.2 试验方法
1.2.1 蝉花菌株的ITS序列分析
取菌株CC15-04 接入PDA 液体培养基,25℃、160r·min-1振荡培养4d。收集菌丝体,液氮充分研磨后,以植物基因组DNA 提取试剂盒制备总DNA。参考文献[11],采用真菌内转录间隔区(ITS)的通用引物ITS1:5′-TCCGTAGGTGAACCTGCGG-3′ 和ITS4:5′-TCCTCCGCTTATTGATATGC-3′进行PCR扩增。扩增体系20μL:ddH2O 12.2μL,5×buffer 4μL,dNTP(2.5mmol·L-1)1.6μL,Taq(pfu)0.4μL(0.5 U),ITS1(10μmol·L-1)0.4 μL,ITS4(10μmol·L-1)0.4μL,DNA 1μL。反应程序:95℃预变性3min,94℃变性30s,55℃复性30s,72℃延伸1min,25个循环;72℃终延伸5min。扩增产物经1% 琼脂糖凝胶电泳检测后,取20ng目标产物连接到pEASY-Blunt克隆载体。筛选阳性克隆送铂尚生物技术(上海)有限公司完成序列分析。获得的目标ITS 序列经GenBank(NCBI)数据库BLAST比对分析,并选取其它真菌来源的同源序列,借助MEGA 7.0软件以邻位法构建系统进化树,确定菌株的分类地位。
1.2.2 碳源对蝉花产纤溶酶的影响
以不同的碳源(20g·L-1)代替YPD培养基中的葡萄糖,分别配制发酵培养基。按2%(V/V)的接种量接入液体菌种,25℃、160r·min-1振荡培养4d。7 000r·min-1离心20min,收集菌丝体和发酵液。菌丝体在50℃下烘至恒重,称重。上清液即发酵液4℃保存,用于纤溶酶活性测定。以不添加碳源的培养基为对照(CK-C),每处理3次重复。
1.2.3 氮源对蝉花产纤溶酶的影响
以不同氮源(9g·L-1)代替YPD培养基中的蛋白胨和酵母浸膏,并配制发酵培养基。同上进行液体发酵试验,并设置不添加氮源的培养基作为对照(CK-N)。每处理3次重复。
1.2.4 正交优化实验
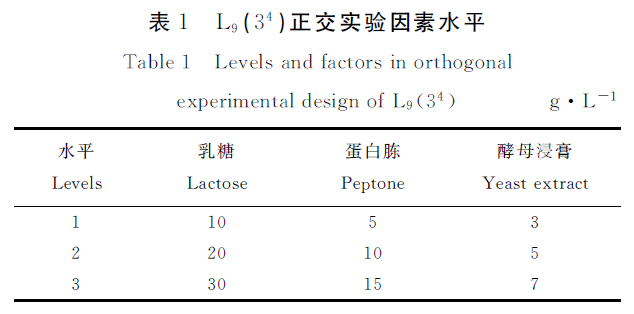
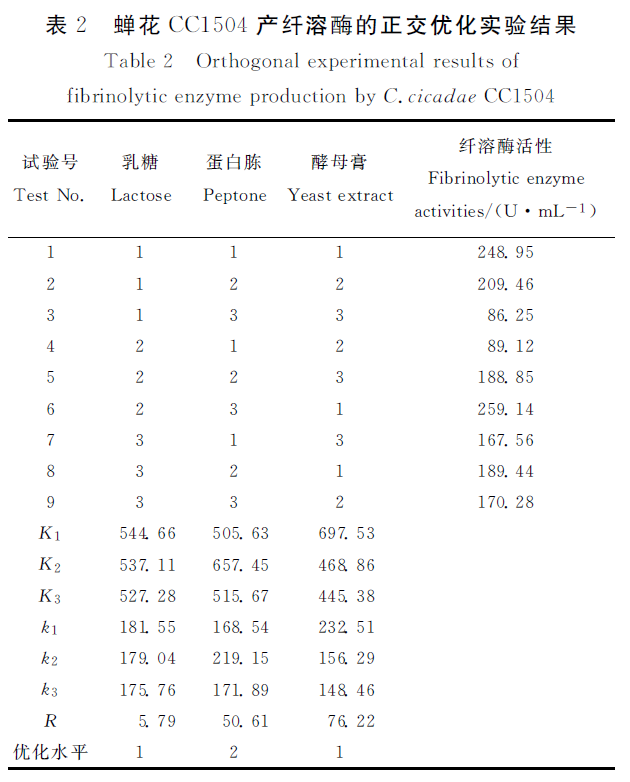
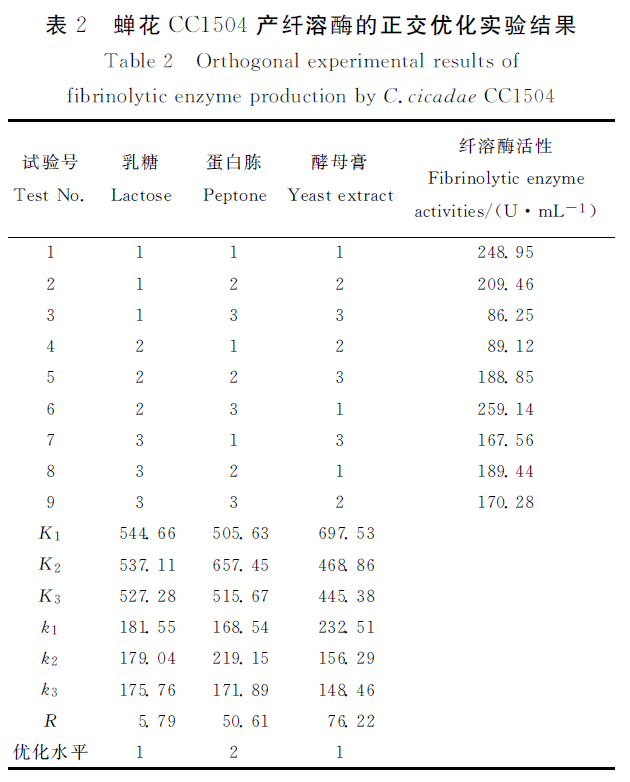
根据以上单因素试验获得的菌株产酶最适碳源和氮源的结果,按照表1和表2设计正交优化实验,分析蝉花菌株发酵产纤溶酶的最优培养基配方。
1.3 项目测定
纤溶酶活性测定的标准曲线参照文献[12],以琼脂糖-纤维蛋白平板法进行纤溶酶活性的测定。A液:称取0.03g琼脂糖,加入3mL PBS缓冲液溶液(0.8g NaCl,0.02g KCl,0.144gNa2HPO4,0.024g KH2PO4,调节pH 7.4,定容至100mL),加热溶解,置于55℃,备用。B液:称取25mg牛血纤维蛋白原,加入2.5mL PBS缓冲液,充分溶解,室温备用。取10U 的凝血酶,加入0.5mL PBS缓冲液。A液、B液及凝血酶溶液快速混合后制备琼脂糖-纤维蛋白平板。在纤维蛋白平板上打直径为5mm 的圆孔,孔内加入的不同浓度的尿激酶标准品(62~620U·mL-1),于37℃保温18h后测量溶解圈的直径。以溶解圈面积的对数为横坐标,酶活力对数为纵坐标,建立标准曲线。以蝉花菌丝发酵液代替尿激酶标准品,测定纤溶酶活性。
1.4 数据分析
采用Origin软件进行作图,采用SPSS 11.0软件对试验数据进行分析。
2 结果与分析
2.1 蝉花菌株的ITS序列分析
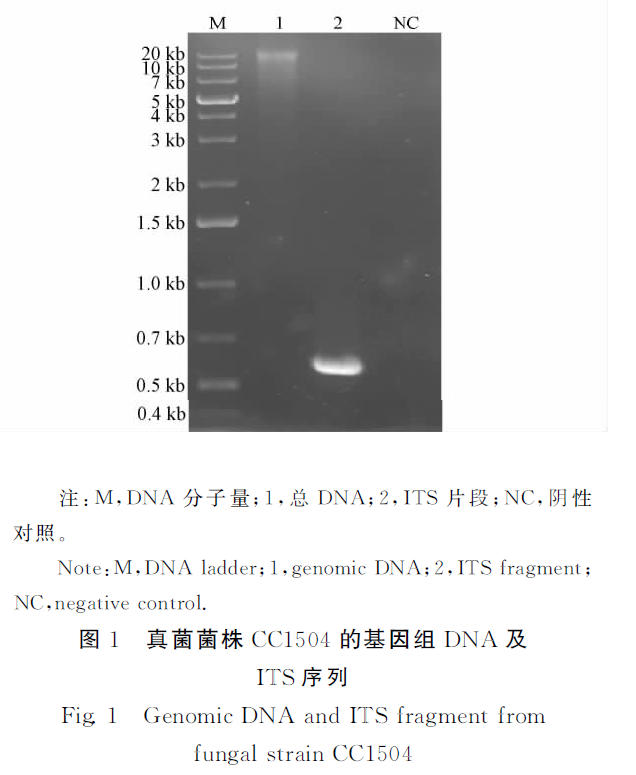
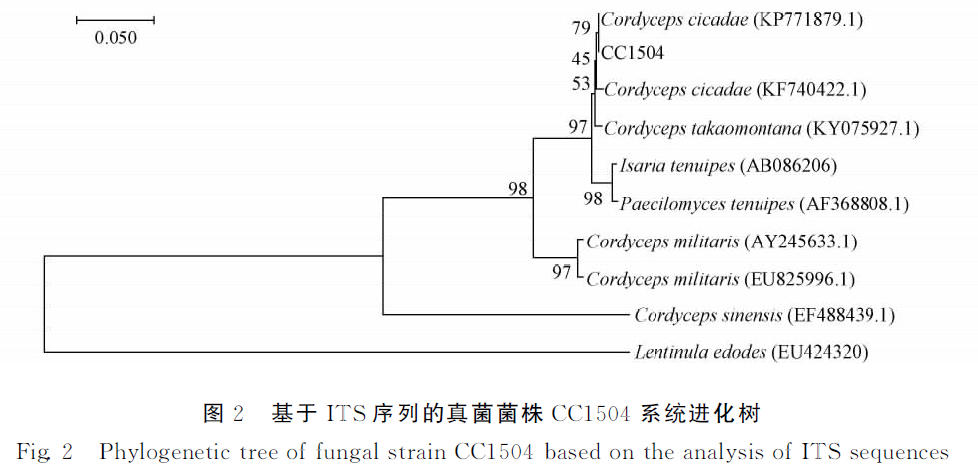
成功提取了蝉花菌株CC1504 的基因组DNA,并扩增获得了其ITS序列(图1)。测序结果显示,该菌株的ITS序列全长587bp(GenBank登陆号:KY924491)。BLAST分析显示,该序列与GenBank中蝉花菌株的ITS序列相似度最高,其中与Cordyceps cicadae CCF菌株的ITS序列(KP771879)相似率为100%。进一步的系统进化树分析表明,其与蝉花菌株处于同一进化分支,确定其分类地位为Cordyceps cicadae(图2)。
2.2 纤溶酶活性测定的标准曲线
通过琼脂糖-纤维蛋白平板法能够检测到蝉花发酵液中存在纤溶酶活性。通过尿激酶标准品测定其对纤维蛋白的溶解能力,以溶解圈面积对数为横坐标(x),酶活力对数为纵坐标(y),建立了纤溶酶活性的标准曲线公式:y=4.74x-7.72,R2=0.996 3。
2.3 蝉花产纤溶酶的最适碳源
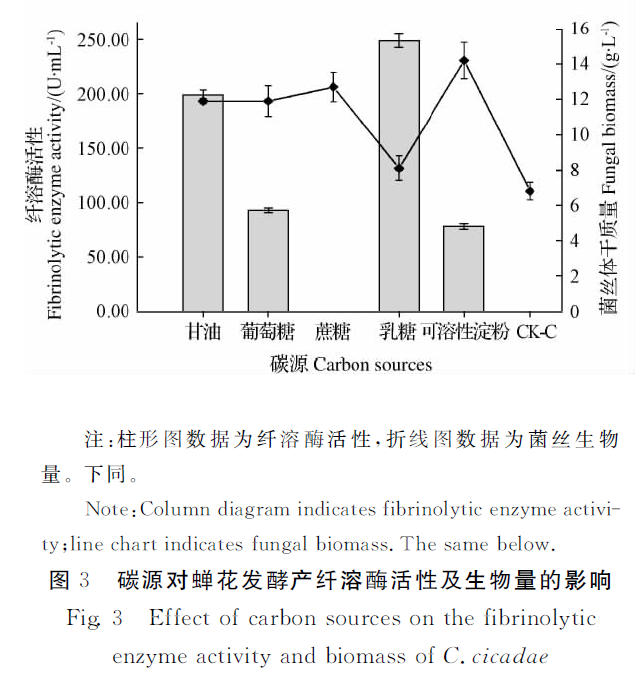
从图3可以看出,碳源的类型显著影响蝉花产纤溶酶的能力。以乳糖为碳源时,发酵液中纤溶酶活性最高,达248.95U·mL-1;甘油次之,为198.94U·mL-1;而葡萄糖及可溶性淀粉的酶活水平分别为92.57、78.02U·mL-1。以蔗糖处理组及对照组(CK-C)均不能检测到纤溶酶活性。可溶性淀粉作为碳源,蝉花的生物量最大,达到14.2g·L-1;乳糖为碳源时,菌丝体生物量最低,为8.1g·L-1,略高于对照组的6.8g·L-1。由此可知,蝉花纤溶酶的产量与菌体生物量无必然的联系。
2.4 蝉花产纤溶酶的最适氮源
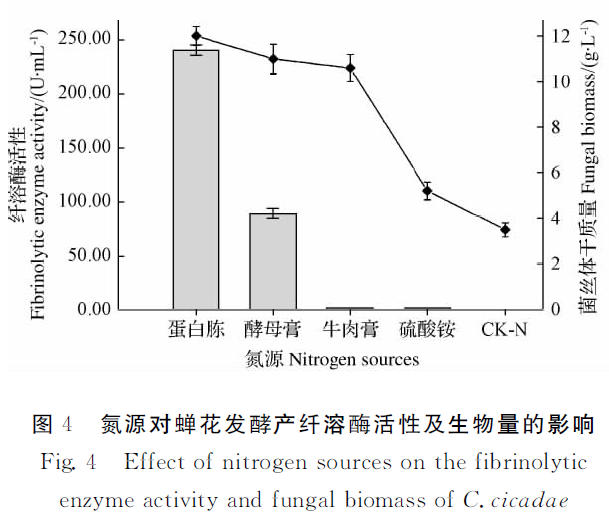
由图4可知,蛋白胨作氮源时,蝉花产纤溶酶的水平最高,可达240.68U·mL-1;其次为酵母膏,为89.23U·mL-1;以牛肉膏或硫酸铵为氮源时,纤溶酶活性极低,分别为1.71、1.47U·mL-1。对照组(CK-N)不能检测到纤溶酶活性。因此,氮源是蝉花产生纤溶酶的重要影响因子之一。以蛋白胨作为氮源时,蝉花菌丝量最高(12g·L-1),而酵母膏、牛肉膏及硫酸铵处理组的生物量依次递减。由此可以认为,氮源对蝉花合成纤溶酶的影响与其影响菌体生长存在一定的联系。
2.5 培养基组成的正交实验优化
以乳糖为碳源,蛋白胨和酵母膏为氮源,利用正交实验对蝉花发酵产纤溶酶水平进行培养基组成的优化(表2)。结果表明,酵母膏对蝉花发酵产纤溶酶的影响最大,R 值为76.22;其次为蛋白胨,R 值为50.61;乳糖的影响最小,R 值为5.79。最优的发酵培养基中碳、氮源分别为:乳糖10g·L-1、蛋白胨10g·L-1、酵母膏3g·L-1。以优化的培养基进行蝉花发酵,获得的纤溶酶水平可达262.05U·mL-1。
3 讨论与结论
蝉花是一类重要的中草药资源,可产生多球壳菌素、多糖、虫草素等多种活性物质[1,3]。该试验对一株野生蝉花子实体的分离培养株CC1504进行了分子鉴定。通过ITS序列系统进化分析,确定了该菌株的分类地位属于蝉花。液体发酵试验表明,该蝉花菌株具有产生纤溶酶的能力。张红霞等[13]研究发现,营养条件对蝉花生物活性物质的合成有着重要影响。该研究通过单因素试验,明确了蝉花产纤溶酶的最佳碳源是乳糖,最佳氮源是蛋白胨。进一步的正交实验表明,最优发酵培养基中碳氮源分别为:乳糖10g·L-1、蛋白胨10g·L-1、酵母膏3g·L-1。以该配方进行蝉花发酵,纤溶酶产生水平高达262.05U·mL-1。目前,主要针对虫草真菌中的蛹虫草进行了产纤溶酶的研究,其发酵水平约为100U·mL-1[9,14]。该研究数据显示,蝉花产纤溶酶的水平约为蛹虫草菌株的2倍,其是开发抗血栓药物的重要生物资源。
比较蝉花发酵的生物量,发现可溶性淀粉为其最佳利用碳源,这与报道的蛹虫草菌株多以葡萄糖或蔗糖为最佳碳源的结论不同[15]。同时,蝉花能够良好的利用蛋白胨、酵母粉或牛肉膏等氮源,这与多数蛹虫草菌株的最佳氮源相一致[16]。蝉花资源在我国南方分布广泛,具有丰富的生态多样性,是否存在合成更高活性纤溶酶的菌株,这需要进一步研究。此外,虫草真菌在人工培养条件下均存在菌种易退化的问题,蝉花离开天然宿主也极易发生退化[17]。因此,后续重点研究蝉花的纤溶酶合成基因及明确其活性组分和酶学特性,将有助加快这一资源的产业化应用。
参考文献
[1] 刘爱英.中国蝉花资源研究应用[M].贵阳:贵州科技出版社,2012.
[2] 朱碧纯,柴一秋,章思思.蝉花虫草活性成分的抗惊厥作用[J].菌物学报,2016,35(5):619-627.
[3] 贺亮,马素云,程俊文,等.药用真菌蝉拟青霉生物活性物质的研究进展[J].食品与生物技术学报,2012,31(1):8-16.
[4] SHARMA S K,GAUTAM N,ATRI N S.Optimized extraction,composition,antioxidant and antimicrobial activities of exo and intracellular polysaccharides from submerged culture of Cordyceps cicadae[J].BMC Complement Altern Med,2015(15):446.
[5] WEI C Y,LI W Q,SHAO S S,et al.Structure and chain conformation of a neutral intracellular heteropolysaccharide from mycelium of Paecilomyces cicadae[J].Carbohyd Polym,2016,136:728-737.
[6] 蔡尤佳,刘晓兰,郑喜群.响应面法优化嗜酸放线菌701产纤溶酶液体发酵培养条件[J].食品研究与开发,2013,34(19):103-108.
[7] 龚福明,李晓然,宋园亮,等.红河传统发酵豆豉中高纤溶活性菌株的分离筛选及其纤溶酶基因分析[J].现代食品科技,2014,30(8):76-81,211.
[8] LIU X,KOPPARAPU N K,SHI X,et al.Purification and biochemical characterization of a novel fibrinolytic enzyme from culture supernatant of Cordyceps militaris[J].J Agr Food Chem,2015,63:2215-2224.
[9] CUI L,DONG M S,CHEN X H,et al.A novel fibrinolytie enzyme fromCordyceps militaris,a Chinese traditional medicinal mushroom[J].World J Microbiol Biotechnol,2008,24(4):483-489.
[10]刘晓兰,张雯舒,郑喜群,等.蛹虫草发酵产物新纤溶酶的分离纯化[J].华南理工大学学报(自然科学版),2012,40(5):107-114.
[11]WHITE T J,BRUNS T,LEE S.et al.Amplification and direct sequencing of fungal ribosomal RNA genes for phylogenetics.PCR protocols:A guide to methods and applications[M].San Diego,Calif:Academic Press,1990:315-322.
[12]ASTRUP T,MLLERTZ S.The fibrin plate method for estimaring fibrinolytie activity[J].Arch Biochem Biophys,1952,40(2):346-351.
[13]张红霞,高新华,陈伟,等.不同培养基人工培育蝉花中有效成分的比较[J].上海农业学报,2016,32(5):101-104.
[14]林群英,封义,姜艳,等.蛹虫草液体培养产纤溶酶条件优化研究[J].北方园艺,2015(24):143-146.
[15]白伟芳,郭丽琼,林俊芳,等.蛹虫草产纤溶酶活性菌株的筛选及产酶条件的研究[J].现代食品科技,2013,29(5):1014-1018.
[16]王玉,刘晓兰.大米主料蛹虫草固体发酵生产纤溶酶的研究[J].食品工业,2015,36(12):22-26.
[17]彭凡,李春如,耿德贵,等.传统药用菌蝉花退化菌株虫体活体复壮的研究[J].安徽农业大学学报,2014,41(2):294-298.