与蝉棒束孢有关的虫草菌生物多样性的研究II.重要药用真菌蝉花有性型的发现及命名
李增智1, 4 栾丰刚2 HYWEL-JONES Nigel L1 张胜利1, 3 陈名君4黄勃4 孙长胜1 陈祝安1 李春如1 谭悠久1 董建飞1
➊浙江泛亚生命科学研究院 浙江 平湖 314200
➋江西农业大学林学院 江西 南昌 330045
➌亳州学院生物工程研究所 安徽 亳州 236800
➍安徽农业大学教育部真菌生物技术工程研究中心 安徽 合肥 230036
摘 要:我国重要药用真菌蝉花的分类地位和学名在国内外长期混乱,因其有性型未被发现,长期以来误作为根据巴西标本命名的Isaria (Paecilomyces) cicadae。作者最近在井冈山发现了其有性型,研究了标本及分离物的形态特征及多位点系统发育特征,并与GenBank 中相关种类的序列进行了对比,证明I.cicadae 是物种复合群,确定蝉花是虫草科虫草属中的新种,使用传统药用真菌蝉花的古老名称将其命名为Cordyceps chanhua。蝉花子座淡橙色到淡桔黄色,子囊壳半埋生,(475–602×222–319)μm,子囊孢子(246–360×1.5–1.8)μm,分孢子圆筒形,(6.4–13.8×2.1–3.1)μm。孢梗束淡黄色至淡黄褐色,分生孢子长椭圆形或圆筒形,(3.5–10.5×1.5–4.5)μm。
关键词:蝉花;有性型;蝉棒束孢;复合种;系统发育
[引用本文] 李增智,栾丰刚,HYWEL-JONES Nigel L,张胜利,陈名君,黄勃,孙长胜,陈祝安,李春如,谭悠久,董建飞,2021. 与蝉棒束孢有关的虫草菌生物多样性的研究II.重要药用真菌蝉花有性型的发现及命名. 菌物学报,40(2)
Li ZZ, Luan FG, HYWEL-JONES Nigel L, Zhang SL, Chen MJ, Huang B, Sun CS, Chen ZA, Li CR, Tan YJ, Dong JF, 2021. Biodiversity of cordycipitoid fungi associated with Isaria cicadae Miquel II. Teleomorph discovery and nomenclature of chanhua, an important medicinal fungus in China. Mycosystema, 40(2)
Corresponding author. E-mail: zzli@ahau.edu.cn
ORCID: LI Zeng-Zhi (0000-0002-9606-5030)
Received: 2020-04-12, accepted: 2020-08-06
Biodiversity of cordycipitoid fungi associated with Isaria cicadae Miquel II.Teleomorph discovery and nomenclature of chanhua, an important medicinal fungus in China
LI Zeng-Zhi1,4 LUAN Feng-Gang2 HYWEL-JONES Nigel L1 ZHANG Sheng-Li1, 3 CHEN Ming-Jun4 HUANG Bo4 SUN Chang-Sheng1 CHEN Zhu-An1 LI Chun-Ru1 TAN You-Jiu1 DONG Jian-Fei1
➊Zhejiang BioAsia Life Science Institute, Pinghu, Zhejiang 314200, China
➋Forestry College, Jiangxi Agricultural University, Nanchang, Jiangxi 330045, China
➌Institute of Bioengineering, Bozhou University, Bozhou, Anhui 236800, China
➍Research Center of Fungal Biotechnology, Anhui Agricultural University, Hefei, Anhui 230036, China
Abstract: The systematic position and scientific name of “chanhua”, an important cordycipitoid mushroom has long been chaotic. Because its teleomorph was unknown, it has long been regarded as Isaria (Paecilomyces) cicadae named based on a Brazilian specimen. The teleomorph of this taxon was recently discovered from Mt. Jinggangshan, Eastern China. In the present paper, the teleomorph and anamorph of the species were studied morphologically and multigene-phylogenetically, the hypothesis that I. cicadae was a species complex was demonstrated, and “chanhua” was verified as an new species in the genus Cordyceps of Cordicipitaceae and then Cordyceps chanhua was proposed using the ancient Chinese name “chanhua” as its epithet. Stromata of C. chanhua are light orange to light saffron, ovoid, (476–602×222–319)μm; ascospores are filiform, (246–360×1.5–1.8)μm and part spores are (6.4–13.8×2.1–3.1)μm. Conidia are long ellipsoid or cylindrical, (3.5–10.5×1.5–4.5)μm.
Key words: Cordyceps chanhua; teleomorph; Isaria cicadae; species complex; phylogeny
长期以来,我国重要药用真菌蝉花的分类地位及名称一直处于混乱状态。当前学界多认定蝉花是Miquel 1838 年依据巴西标本命名的Isaria cicadae Miquel,对二者形态的差异颇欠考虑。因蝉花的有性型一直未发现,因而也影响对其分类地位的判断。过去或现在都有人将Cordyceps cicadae Massee(Massee 1895)视为I. cicadae 的有性型而采用(Wu et al. 2019;Zha et al. 2019);因受日本文化影响,它曾被当做小蝉草Ophiocordyceps sobolifera 的无性型而被称为Cordyceps sobolifera(蔡邦华 1957;刘波1974);它也曾被当做大蝉草(地方名“独角龙”)的无性型而采用Cordyceps cicadae Shing(=Tolypocladium dujiaolongae Y.P. Cao & C.R. Li)之名(幸兴球 1975;梁宗琦 2007);此外,还有人提出蝉花是小林虫草Cordyceps kobayasii Koval 的无性型(Zha et al. 2018)。在 GenBank 中,虽有众多菌株的ITS 序列及两个菌株的五基因序列,但材料皆为无性型。在Isaria属被证明是虫草科中的一个多系的类群(代永东等 2016)后,它在系统发育中已无独立位置。
我国学界寻找蝉花有性型多年,直到2015 年7 月13 日才在江西井冈山发现。有些标本上同时存在有性型和无性型,无性型形态与我国南方各地采挖的药用蝉花一致,符合笔者以蝉棒束孢Isaria cicadae Miquel 之名的详细描述(李增智等 2014),但与Miquel(1838)原描述的孢梗束极其简单的I. cicadae 大相径庭。对井冈山标本及分离物的形态学、分类学和分子系统学研究,不仅有助于确定蝉花的分类地位,而且有助于辨明被认为世界广布的巴西种I.cicadae 的多样性、复合性及在世界各地可能隐含的种类。
1 材料与方法
1.1 形态学研究
有性型描述依据寄主标本,无性型描述则根据纯培养物上的产孢结构。
1.1.1 供试标本:感染虫草菌的竹蝉Platylomia pieli Kato 共7 只。JGS150713 号共5 只,均在毛竹林中采集,其中一只(JGS150713-1)同时具有子座和孢梗束;JGS150725 号,共2 只,均同时具有子座和孢梗束。
1.1.2 供试菌种:BAIC1273 号,从标本JGS150713-1子座分离。纯化后点植到Czapek-Dox 和PSA 培养基上,26℃下培养14d。
1.2 系统发育研究
1.2.1 DNA 提取、ITS 序列和5 基因序列扩增及测序:有性型直接切取子座,采用无菌水冲洗后,采用CTAB 法(刘少华等 2005)提取总DNA。无性型采用组织块分离法,切取部分孢梗束,接种至SDAY 培养基,待菌丝长出后挑取菌落边缘菌丝纯化镜检后,接种至铺有玻璃纸的SDAY 培养基上,培养5d 后,刮取菌丝采用CTAB 法提取基因组DNA。对ITS 序列及LSU、SSU、RPB1、RPB2 和TEF 等5 个基因片段进行PCR 扩增和测序。参考White et al.(1990),选择ITS4/ITS5 用于扩增ITS;参考Vilgalys & Sun(1994)选择LROR/LR5 用于LSU、NS1 和NS4 用于扩增SSU;参考 Castlebury et a(l. 2004),选择 RPB1A/ RPB1C用于扩增RPB1;参考Rojas et al.(2010),选择RPB2-5F/ RPB2-7cR 用于扩增RPB2;参考Rehner & Buckley(2005),选择983F/2218R 用于扩增TEF。采用PCR Master Mix(Promega)的50μL 体系,PCR 反应条件参考相应文献进行,依据PCR 结果对退火温度进行适当调整。扩增产物经0.8%琼脂糖凝胶电泳检测合格后送生工生物测序。
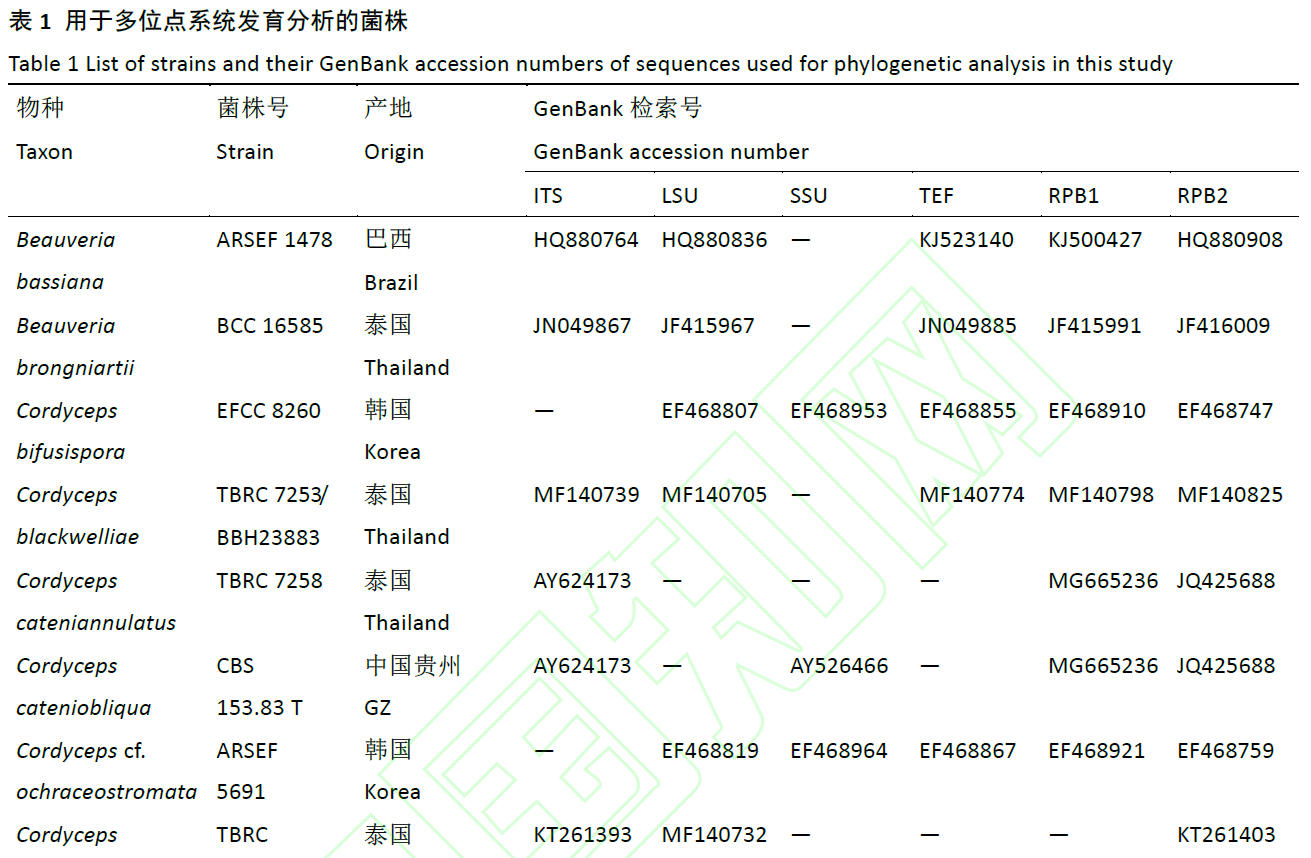
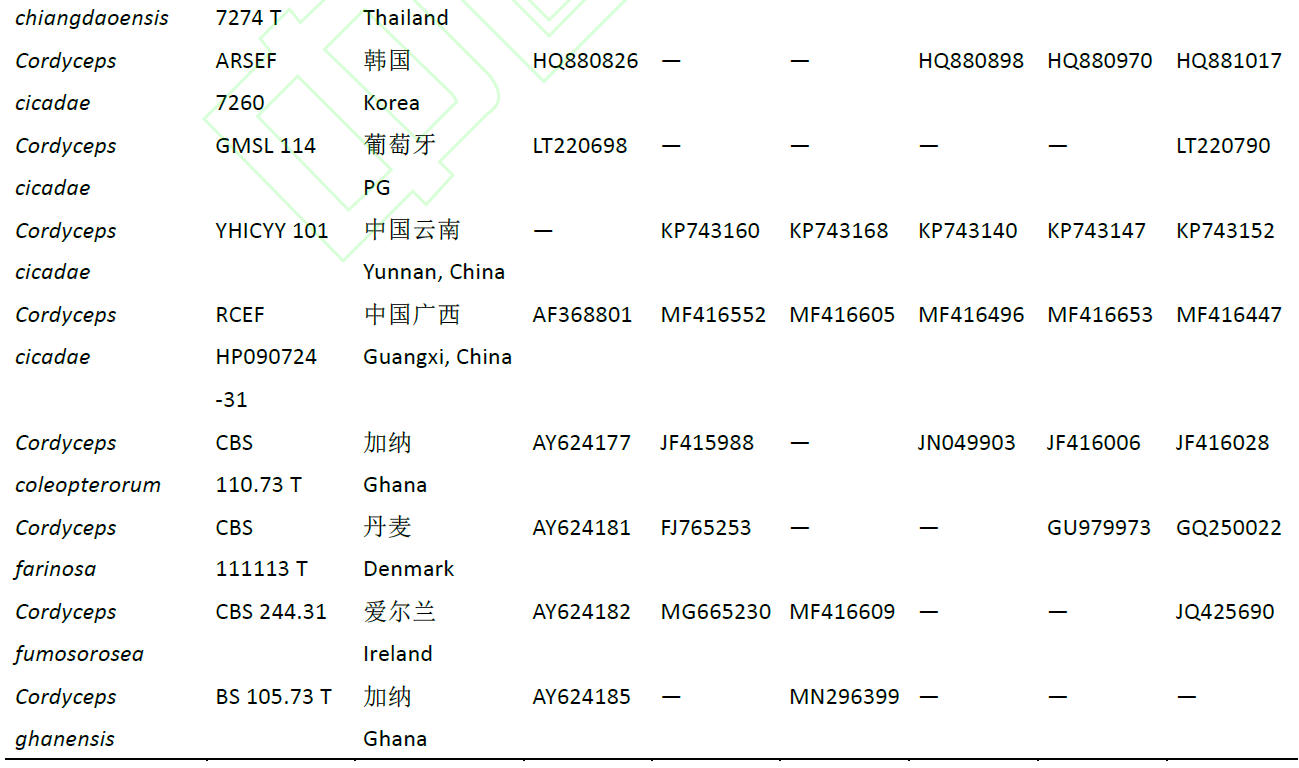
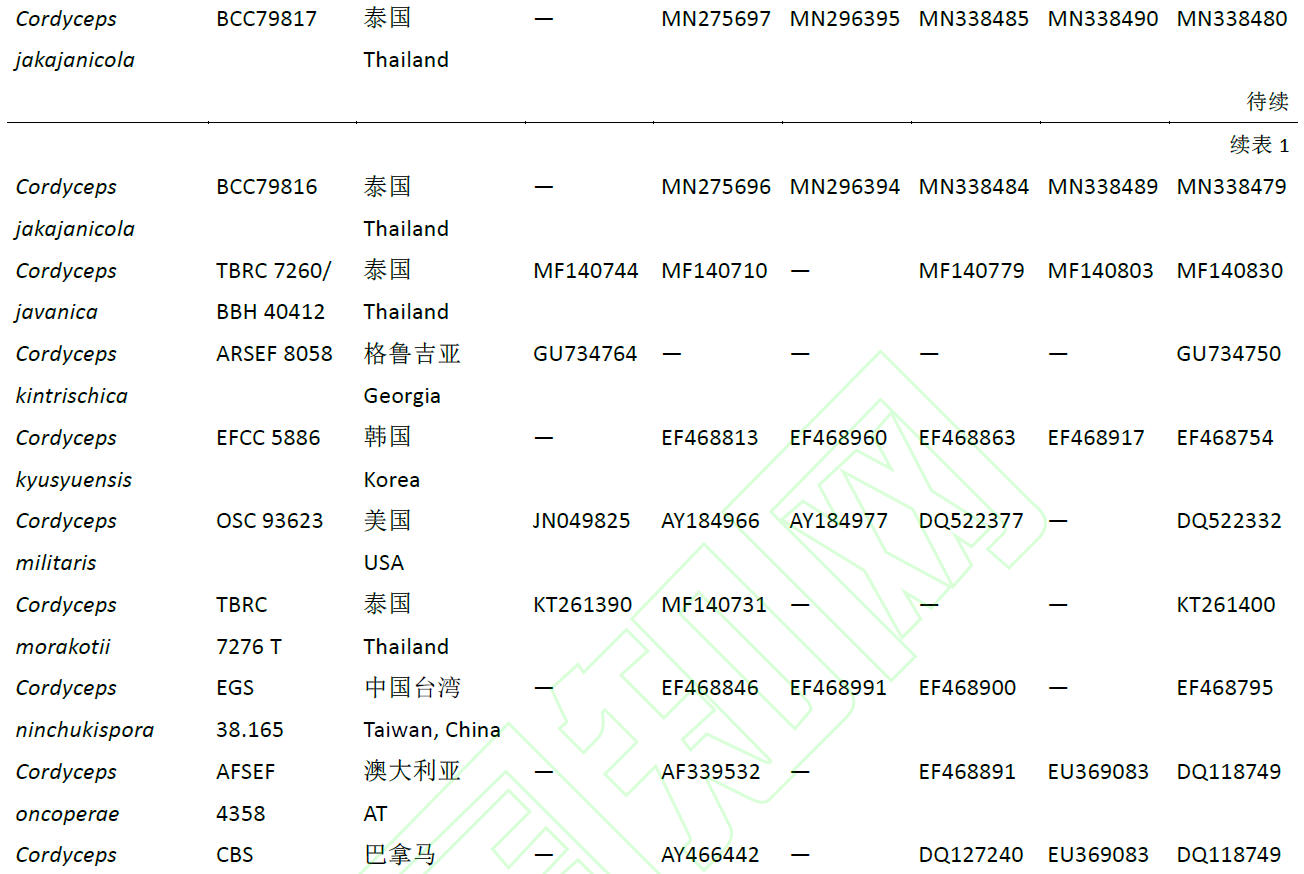
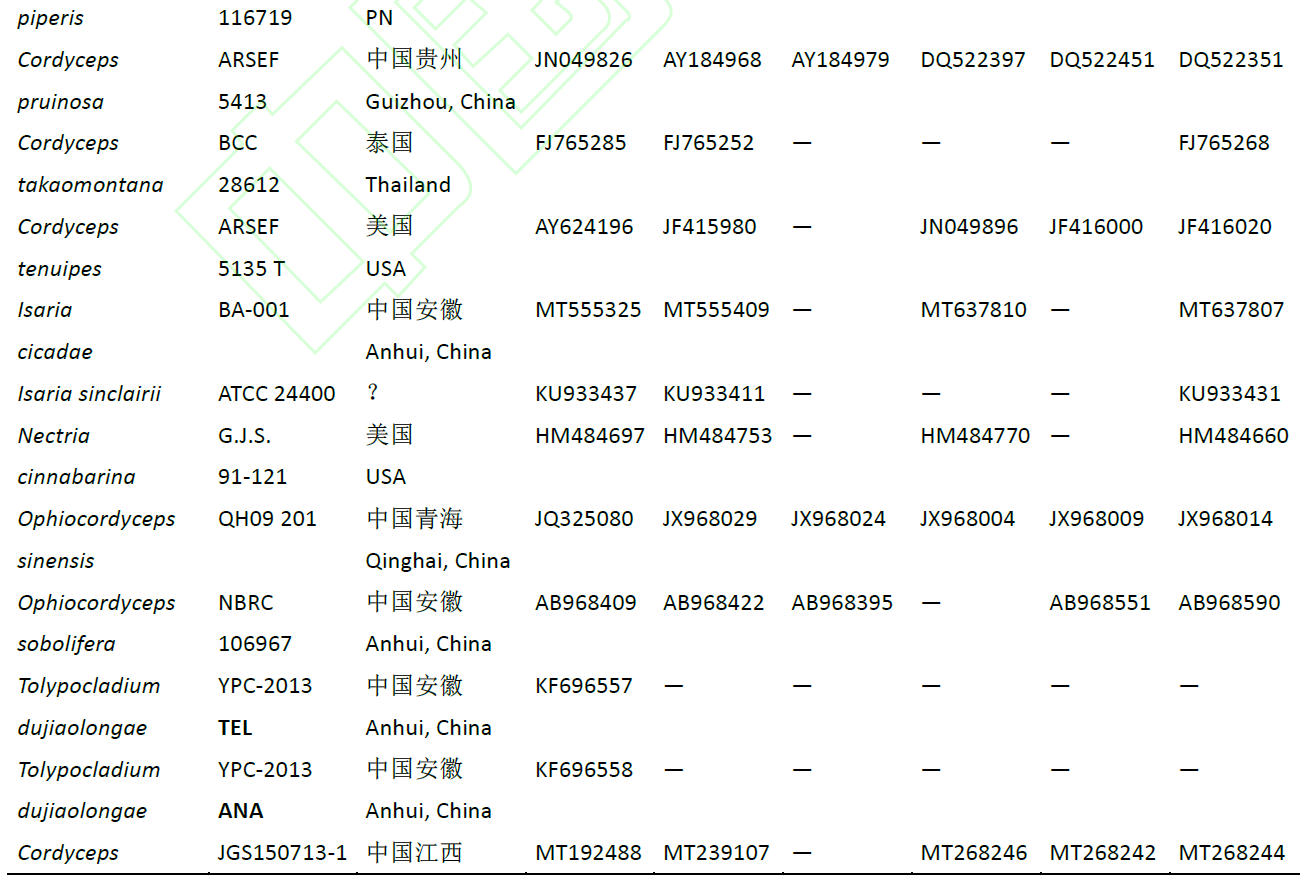
1.2.2 多位点系统发育分析:为确定井冈山标本的确切分类地位,参考Sung et al.(2007)、代永东等(2016)和Mongkolsamrit et al.(2018)的报道,从GenBank 选取标为Cordyceps cicadae的4 个菌株和1 个标为Isaria cicadae 的菌株的ITS 位点和其他5 基因位点序列,GenBank 中唯一的Isaria sinclairii 菌株的 ITS 序列,以及虫草属Cordyceps 的其他22 个分类单元的23 个菌株(C. jakajanicola 有2 个菌株)的ITS 位点和其他5 基因位点序列进行多位点系统发育分析;为进一步澄清蝉花与曾被误认的小蝉草O. sobolifera和大蝉草(现称独角龙弯颈霉)T. dujiaolongae(幸辛球 1975;Li et al. 2018)的系统发育关系,也选取了它们及线虫草科冬虫夏草Ophiocordyceps sinensis 各一个菌株的多位点序列。采用MUSCLE v3.8.31(Edgar 2004)对6 个位点进行多序列比对, 对每个位点的序列矩阵校对后, 使用 SequenceMatrix 1.8 的方法(Vaidya et al. 2011)对ITS 和5 个基因序列进行拼接并导出序列矩阵。
数据集包括30 个分类单元的38 个菌株(含外群及井冈山材料),157 条DNA 序列的6 位点矩阵,其中ITS 723bp、LSU 911bp、SSU 1 295bp、RPB1 698bp、RPB2 1 016bp 和TEF 968bp;序列总长度达5 611bp(表1),1 776 个独特模式,其中3 696 个恒定点,1 518 个简约信息点,397个单碱基差异点。使用IQ-TREE (Minh et al. 2020) 软件包,采用最大似然法(Rehner & Buckley 2005),以肉座菌目丛赤壳科朱红丛赤壳Nectria cinnabarina 作为外群,构建ML 系统发育树。最大似然法用1 000 次重复获得自举支持率,同时选用超快自展和1 000 次SH-aLRT 检验估算节点的可信度。经IQ-TREE 计算,得到联合基因的贝叶斯信息准则(BIC)最适模型为:TIM3+F+G4。

2 结果与分析
2.1 多位点系统发育分析
30 个分类单元的38 个菌株的6 位点系统发育分析所获得的ML 系统树(图1)清楚地显示,井冈山的蝉花标本(JGS150713-1 TEL)和分离株(JGS150713-1 ANA)与浙江泛亚生物医药的蝉花生产菌株BA001 以100%的支持率形成虫草科里的一个单独分支。BA001 的全基因组序列已由该公司测定,并于2011 年3 月16 日使用P.cicadae 之名在香港发布。因此,这一分支的多位点序列和GenBank 上的全基因组序列(检索号:PRJNA53245)典型地代表了我国古老的药用真菌蝉花的DNA 特征。
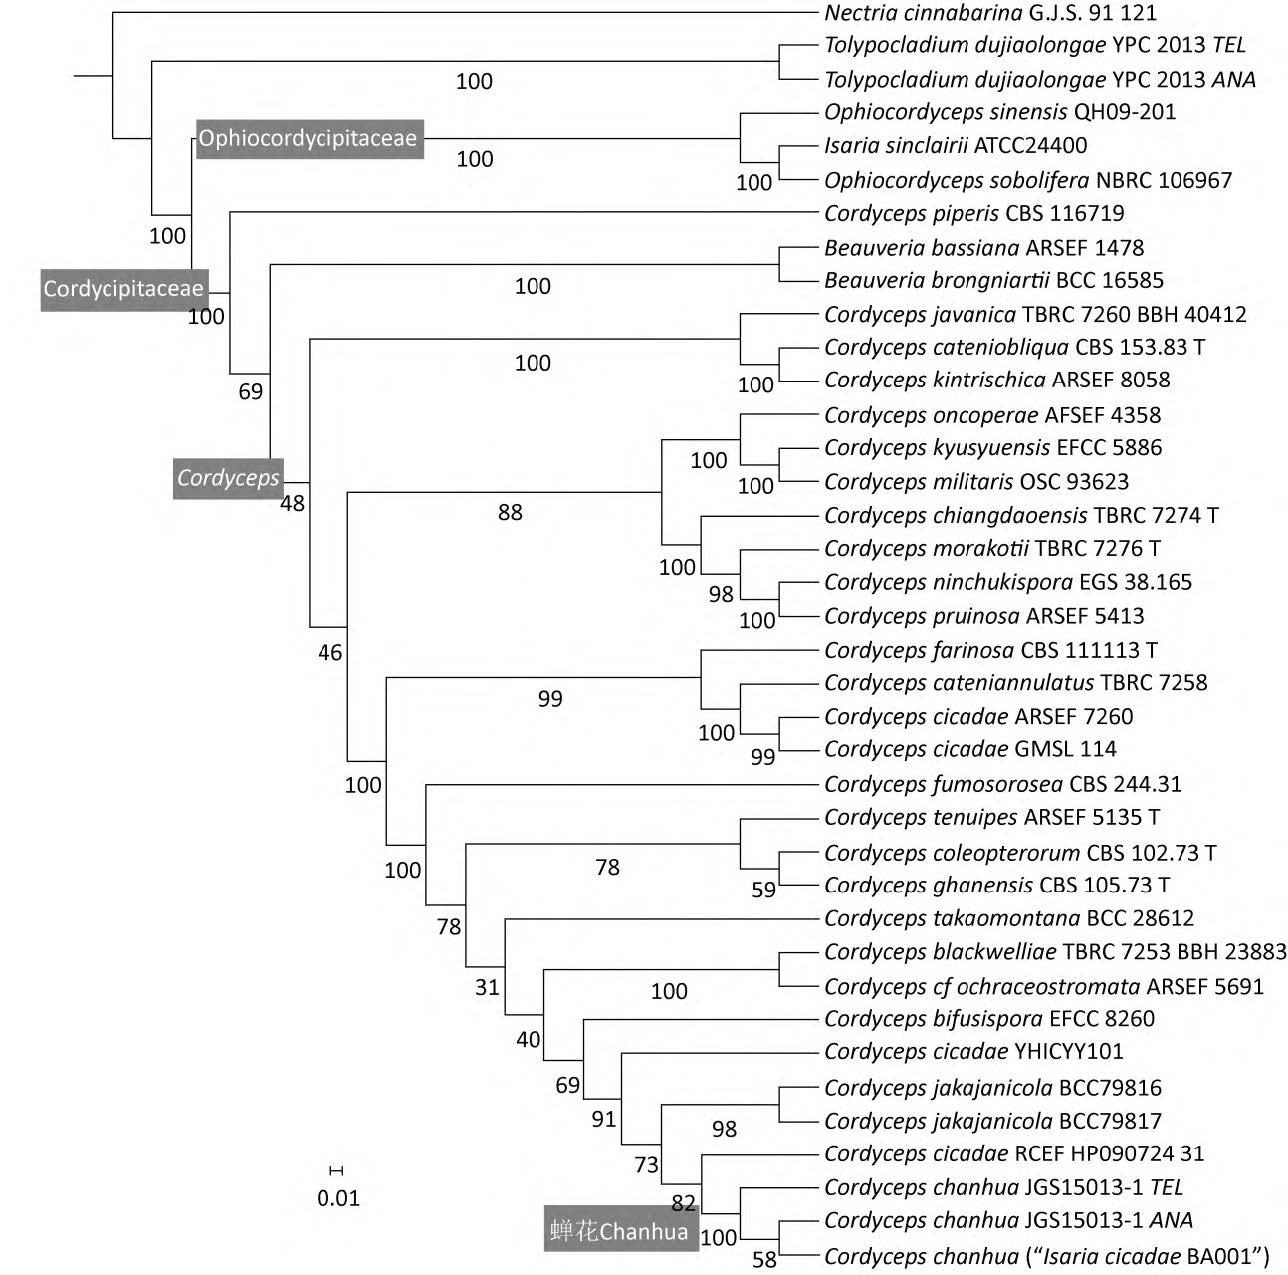
图1 蝉花有性型(JGS0713-1 TEL)和无性型(JGS0713-1 ANA)与虫草属其他物种的多位点系统发育关系
Fig. 1 Multilocal phylogenetic relationship of the teleomorph and anamorph of Cordyceps chanhua to other cordycipitoid species.
从系统树中可见,历史上曾被误认为是蝉花的小蝉草和大蝉草(独角龙弯颈霉)都不属于蝉花所在的虫草科。小蝉草属于线虫草科,而大蝉草(独角龙弯颈霉)则不仅不属于虫草科,而且还有可能不属于线虫草科,需要进一步研究确定。
在系统树中,蝉花分支与其它已见诸报道的C. cicadae 菌株分开。与该分支最近的广西猫儿山菌株C. cicadae RCEF HP090724-31(Kepler et al. 2017)支持率为82%,与代永东等(2016)报道的云南菌株YHICYY 101 的关系甚至远于子囊孢子形态截然不同的泰蝉虫草Cordyceps jakajanicola。蝉花与Sharma et al.(2018)报道的葡萄牙菌株 GMSL 114 和Rehner et al.(2011)报道的韩国菌株ARSEF 7260 相距更远。这从系统发育上证明了本系列论文第1 篇(李增智等 待发表)里提出的质疑,即Samson(1974)组合的Paecilomyces cicadae 和当代广为使用的Isaria (Paecilomyces) cicadae(Luangsa-ard et al. 2005)是一个物种复合群(species complex)。
2.2 形态描述
从子座上和孢梗束上分离出的无性型之间以及与BA001 菌株之间的培养特征和显微特征一致。
蝉花 新种
Cordyceps chanhua Z.Z. Li, F.G. Luan, Hywel-Jones, C.R. Li & S.L. Zhang, sp. nov.
MycoBank MB 835243
子座:从蝉若虫头部及前胸背板各长出一个具淡橙色或淡桔黄色的柄,多次二岐分枝,可形成淡桔黄色或橙色的可孕的头1–8 个以上。也可二岐分枝同时产生子座和孢梗束。子囊壳半埋生,拟卵形,外壁单层,透明,长476–602μm,宽222–319μm,无间丝。子囊无色透明,圆筒形,有深裂的子囊帽,成熟时长235–380μm,宽2–3μm。子囊孢子8 条,光滑,丝状,无色透明,长247–360μm,宽1.5–1.8μm,断裂成(6.4–13.8×2.1–3.1)μm 长的分孢子。
孢梗束:出土前从蝉若虫头部及前胸背板长出1–3 个柱状的柄(图2-A),顶部尖削;有时也可从子座上长出;柄新鲜时淡黄色,干燥后深褐色。出土后延伸到一定长度后开始多次总状分枝,分枝柄部淡黄白色至橙黄色,干燥后淡黄褐色,长9–38mm,宽2–3.5mm,端部淡黄白色,形成由6–25 个长30–80mm,宽2–6mm 的分枝组成的鸡冠花状或西蓝花状的致密产孢结构,密布枯草黄色分生孢子。也可先在土壤中形成淡褐色的较粗壮的菌索,出土后再从菌索上长出孢梗束。在孢梗束形成过程中,寄主体表局部或通体覆盖有菌丝组成的菌膜。
菌落:24℃下在Czapek-Dox 培养基上14d直径达49–55mm,在PSA 培养基上14d 直径达60–72mm,黄白色至淡黄色,绒毛状,具明显的轮纹或辐射纹,背面略呈白色;渗出液水珠状,无色;后期因产生大量分生孢子致使菌落表面呈粉状,淡黄白色。菌丝管状,分隔,壁光滑,无色透明,宽2.0–3.0μm。分生孢子梗轮状分枝为2–5 个不规则的瓶梗(产孢细胞);标本上的瓶梗基部多为球形膨大,培养物上的瓶梗多为瓶形膨大,皆向上形成突然变细的颈部,偶呈锥状尖削;宽0.5μm,(4.2–7(13.5)×2.3-3.5(5.2))μm。分生孢子形成向基型的链,单细胞,长椭圆形或圆筒形, 两端钝圆, 多对称, 偶弯曲,(3.5–10.5×1.5–4.5)μm,长径比2.4(2.2–2.8)。在老培养物上形成厚垣孢子,单生,棒状,肾形或茄形,单细胞,淡褐色,(13–26.5×3–12)μm,多光滑;成熟时椭球形或球形,暗褐色,直径6–18μm,有脐,具刺;附着在容器壁上聚集成由黑色小颗粒组成的环状物,易被误认为污染物。
模式标本:JGS150713-1,寄主:竹蝉Platylomia pieli Kato(同翅目:蝉科),采自江西省井冈山的毛竹林,东经114°07’,北纬26°34’,海拔961m。采集时间2015 年7 月13 日,采集人:栾丰刚。模式标本及干培养物存浙江泛亚生命科学研究院虫生真菌标本室(ZBAH)。
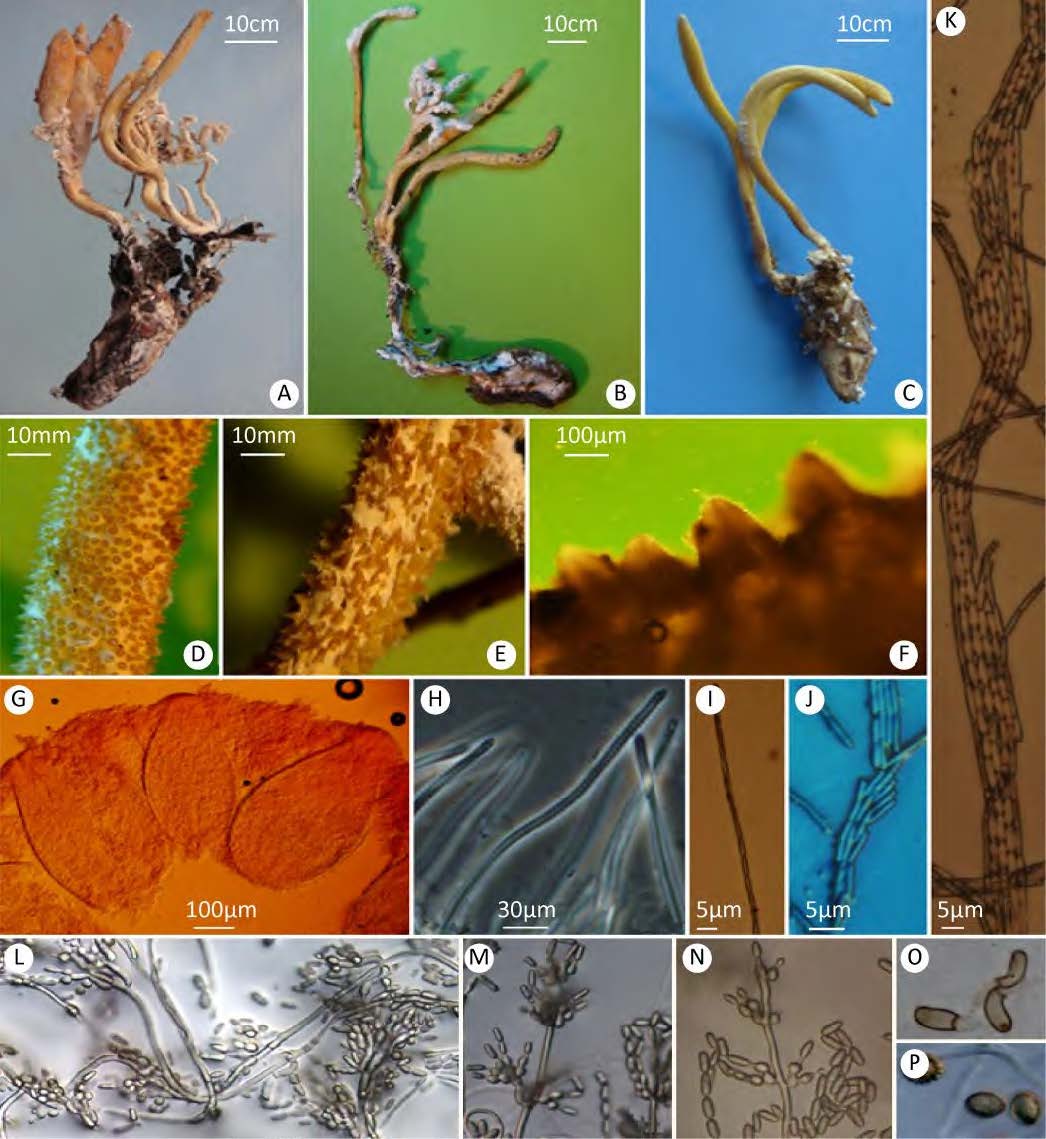
图2 蝉花的形态 A,B:长有完整子座和孢梗束的新鲜标本(A)和干标本(B);C:只有子座的标本;D,E:子座细部;F:半埋生的子囊壳;G:压片下的子囊壳呈埋生状;H:子囊;I–K:子囊孢子;J:子囊孢子断裂成分孢子;L,M:PSA 培养基上的分生孢子梗和链生的分生孢子;N:标本上的分生孢子梗和链生的分生孢子;O:未成熟的厚垣孢子;P:成熟的厚垣孢子
Fig. 2 Morphology of Cordyceps chanhua. A, B: Fresh (A) and dry (B) specimens with both stromata and conidiophores; C: A specimen with only stromata; D, E: Stroma in detail; F: Subimmersed perithecia; G: Pseudo-immersed perithecia under coverslip; H: Asci; I–K: Ascospres; J: Part spores from broken ascospores; L, M: Conidiophores and conidia in chain on PSA medium; N: Conidiophores and conidia in chain from specimen; O: Immature chlamydospores; P: Mature chlamydospores.
名称词源:chanhua,蝉花的汉字拼音,古药材名,源自公元5 世纪雷斅《雷公炮炙论》。Cordyceps chanhua Z.Z. Li, F.G. Luan, Hywel-Jones, C.R. Li & S.L. Zhang, sp. nov.
Stromata solitary, simple from dead cicada (Plate 2-A) or from rhizomorph, with fertile part orange to saffron, stipe light orange to light saffron, and base light yellowish, cylindric or flattened clavate. Perithecia partly immersed, ovoid with single-layered hyaline wall, (476–602×222–319) μm. Hamathecia absent. Asci hyaline, cylindric, capitate, 8-spored, 235–380μm long and 2.1–3μm wide when mature, Ascospores smooth, filiform, hyaline, 8-spored, 247–360μm long and 1.5–1.8μm wide, breaking into part spores,(6.4–13.8×2.1–3.1)μm.
Colonies attaining a diameter of 49–55mm on Czapek-Dox and 60–72mm on PDA after 14 days at 24°C, pale yellowish to yellowish, villous, with clear rings or radial lines. Reverse colorless. Synnemata pale yellowish, consisting of many erect or slightly curved branches emerging from front part of cadavers, especially from head; the branches cylindrical with tapering tip before emerging from soil and gradually branching into clusters of 6–25 branches after emerging, 30–80mm long, 2–6mm wide; stalks yellowish when fresh and dark brown after drying. Conidiophores consisting of verticillate branches with whorls of 2 to 5 phialides. Phialides (4.2–7(–13.5)×2.3–3.5 (–5.2) ) μm, consisting of a globose, oval or occasionally conical swollen basal portion tapering suddenly into a thin neck 0.5μm wide. Conidia in dry basipetal chains, one celled, long ellipsoid or cylindrical, mostly symmetrical, rarely curved,(4.2–7(13.5)×2.3–3.5(5.2))μm. Chlamydospores solitary, clavate, cylindrical, reniform or egg plant shaped, unicellular, (13–26.5×3–12)μm, with wall mostly smooth when immature, ellipsoidal or spherical, dark brown, 6-18μm in diam., and spinose with a navel when mature.
Holotype: JGS150713-1, on bamboo cicada Platylomia pieli, Kato (Hemiptera: Cicadidae, collected by Fenggang Luan, in a bamboo plantation in Mt Jinggangshan, 114°07’ E,26°34’N , 961m above sea level, 13-07-2015. Type specimen and dry culture stored at ZBAH, Zhejiang BioAsia Herbarium, Zhajiang BioAsia Pharmaceutical Co., Ltd. Etymology: Chanhua, cicada flower in Chinese, an ancient Chinese medical fungus, originating in Leixiao's Mr. Lei's Preparation Method, written in 5th century AD.
2.3 同近似种的比较
从子座宏观形态上看,蝉花与小林虫草 Cordyceps kobayasii Koval(=C. sinclairii Kobayasi)相似,但其(475–602×222–319)μm 的子囊壳比小林虫草的(270–330×180–195)μm 大;而其( 235–380×2–3 ) μm 的子囊比小林虫草的(150–200×8–13)μm 细长。显然,它们不是同一种虫草。
蝉花的DNA 近似种泰蝉虫草子囊孢子极其独特长达250–310μm,流星锤状,即中间形成直径仅1μm 宽的细长的腰,而两端膨大成梭状;其分生孢子比蝉花小,稍细长。显然是不同的物种。
另外,刘爱英等(2011)曾在《中国农业杂志》发表“虫草属一新种,蝉棒束孢有性型”一文。根据其《中国蝉花资源研究应用》(刘爱英 2012)一书描述,这个从广西乐业县神木天坑中采集的标本子囊壳(676–718.5×338–402)μm,远大于蝉花,但无子囊孢子大小的量度,分孢子(2–3×1–1.5)μm,远小于蝉花。因此,这个神木蝉虫草新种Cordyceps cicadae-SM AY Liu & X Zou 不是本文描述的蝉花有性型。
3 讨论
Miquel(1838)描述的I. cicadae 的巴西模式标本极其简单,连分生孢子的量度都没有,插图也过于简单、模糊。而Samson(1974)在将其组合为Paecilomyces cicadae 时,其详细形态描述及插图是根据他对他所组合的其它物种标本的观察,因此不可避免地反映了混进的其它物种的性状,例如从其插图中即可发现,三排分生孢子中有两排是圆筒形,而第三排竟然都是弯曲的肾形!按照他宽广的描述,P. cicadae 的分生孢子(3.5–8.0×1.5–3.5)μm,从而与其他一些种多有重叠:Cunninghum(1921)描述新西兰的 I. sinclairii 的分生孢子长7–8μm;而Kobayasi(1939)从日本标本描述的I. sinclairii 的分生孢子仅稍短而已,大小为(5.9×2–3)μm;与Koval描述远东标本的(6–7×2–2.5)μm 间差别也不大。几个描述的分生孢子几乎都是圆筒形;而井冈山标本分离株也是圆筒形,(3.5–10.5×1.5–4.5)μm,因此,单从分生孢子的量度看是难以区别的。在传统的形态分类学时代,他把产自亚非拉的多个只了解无性型形态的近似种都处理为新组合可以理解;但在分子时代,通过多位点系统发育分析将复合种剥离既不难,也势在必行。蝉花有性型的发现是剥离这个物种复合群的第一步,今后对各大洲寄生蝉的I. cicadae 近似种的研究可能会继续分解出更多的种类。
综上所述,多位点系统发育证据显示,Isaria (Paecilomyces) cicadae 虽然在除南极以外的各大洲都有记载,但无论是形态还是DNA 序列都表现出一定的多样性和异质性;各种证据都支持,这个当今学界广泛认可的虫草无疑是个物种复合群,其特征集要系Samson(1974)集合不同地区分布的不同近似种的特征而描述,并非同一物种在不同地区的不同标本;这样的特征集要导致了各国同行对近似种的误判。根据本研究的结果,即使在中国,在目前认定的秦岭—淮河以南的蝉花自然分布区里,被认作蝉花而使用的中药材涉及到的物种多样性也不容忽视,很可能也含有隐含种。例如,云南记载YHICYY 001 和广西菌株RCEF HP090724-31 的分类地位就需要进一步研究。
原产新西兰的辛克莱棒束孢Isaria sinclairii (Berk.) Lloyd 被Samson ( 1974 ) 组合为 Paecilomyces cicadae,在世界各地都有报道,特别是日本,在东京大学综合研究博物馆就保存有大量定名为I. sinclairii 的标本。遗憾的是,在 GenBank 中没有任何新西兰和日本的I. sinclairii 序列,只能检索到Suh et al.(2016)以该名上传的ITCC 24400 菌株(产地未知)的3 个序列,它甚至远离虫草科而与小蝉草聚在一起,日本文化中将小蝉草与蝉花混为一谈的历史(李增智等 2020,已接受)或许与此有关。东京大学的这些标本与新西兰原描述的I. sinclairii 是否是同一物种?与巴西物种I. cicadae 是否为同一物种?本研究中韩国和葡萄牙的标本与I. cicadae 是否为同一物种?再进一步,Samson(1974)组合在一起的那些亚洲种(蛁蟟棒束孢I. cosmopsaltria、蚱蝉棒束孢I. cryptotympanae)、美洲种(树棒束孢Isaria arbuscura)和非洲种(哈利奥特棒束孢Isaria harioti)与I. cicadae 或I. sinclairii 是否为同一物种?世界各地的I. cicadae complex 可能隐含着哪些种?这些问题将在本系列论文的下一篇关于I. cicadae/I. sinclairii 多样性问题的研究中进行讨论。
最后,从图1 的系统树中可见,把虫草属 Cordyceps 与白僵菌属Beauveria 分为两个Clade的支持率相对不高,只有69%,而虫草属内二次及三次分歧的支持率更低,分别只有48%和46%。这表明狭义虫草属(Cordyceps sensu stricto)作为单系的证据依然不足,尚需更多菌株的多位点序列证据的支持。
[REFERENCES]
Cai BH, 1957. Insect Classification. Part A. Financial Economics Press, Beijing. 64 (in Chinese)
Castlebury LA, Rossman AY, Sung GH, Hyten A, Spatafora JW, 2004. Multigene phylogeny reveals new lineage for Stachybotrys chartarum, the indoor air fungus. Mycological Research, 108: 864-872
Cunnighum GH, 1921. The Genus Cordyceps in New Zealand. Transactions and Proceedings of the Royal Society of New Zealand, 53: 372-382
Dai YD, Yu H, Zeng WB, Yang JY, He L, 2016. Multilocus phylogenetic analyses of the genus Isaria (Ascomycota, Cordycipitaceae). Mycosystema, 35(2): 147-160 (in Chinese)
Edgar, RC, 2004. MUSCLE: multiple sequence alignment with high accuracy and high throughput. Nucleic Acids Research, 32(5): 1792-1797
Kepler RM, Luangsa-ard JJ, Hywel-Jones NL, Quandt AA, Sung G-H, Rehner SA, Aime MC, Henke TW, Sanjuan T, Zare R, Chen MJ, Li ZZ, Rossman AY, Spatafora JW, Shrestha B, 2017. A phylogenetically-based nomenclature for Cordycipitaceae (Hypocreales). IMA Fungus, 8(2): 335-353
Kobayasi Y, 1939. On the genus Cordyceps and its allies on Cicadidae from Japan. Bulletin of the Biogeographical Society of Japan, 9(8): 161-169
Li CR, Hywel-Jones N, Cao YP, Nam SH, Li ZZ, 2018. Tolypocladium dujiaolongae sp. nov. and its allies. Mycotaxon, 133: 229-241
Li ZZ, Chen ZA, Chen YP, 2014. Cicada flower, a national cordycipitoid treasure. Hefei University of Technology Press, Hefei. 276 (in Chinese)
Li ZZ, Hywel-Jones NL, Luan FG, Zhang SL, Sun CS, Chen ZA, Li CR, Tan YJ, Dong JF, 2020. Biodiversity of cordycipitoid fungi associated with Isaria cicadae Miquel, I. Nomenclatural literature study of chanhua, an important Chinese medicinal cordycipitoid mushroom recorded 1600 years ago. Mycosystema, 40(3): (in Chinese)
Liang ZQ, 2007. Flora Fungorum Sinicorum. Vol. 32, Cordyceps. Science Press, Beijing. 77-80 (in Chinese)
Liu AY, Zou X, Chen B, 2011. A new species of Cordyceps, the telemorph of Isaria cicadae Miq. China Agricultural Journal (Academic ed), 11: 10-14 (in Chinese)
Liu B, 1974. Chinese Medicinal Mushrooms. People’s Medical Press, Taiyuan. 14-15 (in Chinese)
Liu SH, Lu JP, Zhu RL, Dai FM, 2005. A rapid and simple extraction method for plant pathogenic fungi. Acta Phytopathologica Sinica, 35(4): 362-365 (in Chinese)
Massee G, 1895. A Revision of the genus Cordyceps. Annals of Botany, 9(33): 1-42
Minh BQ, Hahn MW, Lanfear R, 2020. New methods to calculate concordance factors for phylogenomic datasets. Mol Biol Evol https://doi.org/10.1093/molbev/msaa106
Miquel FAW, 1838. Sur une Novelle d'Isaria, du Brésil. Bulletin des Sciences Physiques et Naturelles Néerlande, 1838: 86
Mongkolsamrita S, Noisripooma W, Thanakitpipattanaa D, Wutikhunb T, Spataforac JW, Luangsa-ard J, 2018. Disentangling cryptic species with isaria-like morphs in Cordycipitaceae. Mycologia, 110(1): 230-257
Rehner, SA, Buckley E, 2005. A Beauveria phyloggeny inferred from nuclear ITS and EF1-alpha sequences: evidence for cryptic diversification and links to Cordyceps teleomorphs. Mycologia, 97(1): 84-98
Rehner SA, Minnis AM, Sung GH, Luangsa-ard JJ, Devotto L, Humber RA, 2011. Entomopathogenic fungi in Portuguese vineyards soils: suggesting a ‘Galleria-Tenebrio-bait method’ as bait-insects Galleria and Tenebrio significantly underestimate the respective recoveries of Metarhizium (robertsii) and Beauveria (bassiana). Mycologia 103(5): 1055-1073
Rojas EI, Rehner S, Samuels GJ, van Bael SA, Herre EA, Canon P, Chen R, Pang JF, Wang RW, Zhang YP, Peng YQ, 2010. Collectotrichum gloeosporioides s.l. associated with Theobroma cacao and other plants in Panama: multilocus phylogebies distinguish host-associated pathogens from asymptomatic endophytes. Mycologia, 102: 1318-1338
Samson RA, 1974. Paecilomyces and some allied Hyphomycetes. Studies in Mycology 6: 32-33
Sharma L, Oliveira I, Torres L, Marques G, 2018. Entomopathogenic fungi in Portuguese vineyards soils: suggesting a ‘Galleria-Tenebrio-bait method’ as baitinsects Galleria and Tenebrio significantly underestimate the respective recoveries of Metarhizium (robertsii) and Beauveria (bassiana). MycoKeys 38: 1-23
Shing SZ, 1975. Classification of Cordyceps sobolifera (Hill) Berk. et Br. and Cordyceps cicadae Shing sp. nov. Acta Microbiological Sinica 15(1): 21-26
Sung GH, Hywel-Jones NL, Sung JM, Luangsa-ard JJ, Shrestha B, Spatafora JW. 2007. Phylogenetic classification of Cordyceps and the clavicipitaceous fungi. Studies in Mycology, 57: 5-59
Vaidya G, Lohman DJ, Meier R, 2011. SequenceMatrix: concatenation software for the fast assembly of multigene datasets with character set and codon information. Cladistics, 27(2): 171-80
Vilgalys, R, Sun, BL, 1994. Ancient and recent patterns of geographic speciation in the oyster mushroom Pleurotus revealed by phylogenetic analysis of ribosomal DNA sequences. Proceedings of Natural Academy of Science of USA, 91: 4599-4603
White TJ, Bruns T, Lee S, Taylor JW, 1990. Amplification and direct sequencing of fungal ribosomal RNA genes for phylogenetics. In: Innis MA, Gelfand DH, Sninsky JJ, White TJ (eds.) PCR protocols: a guide to methods and applications. Academic Press, New York. 315-322
Wu F, Zhou LW, Yang ZL, Bau T, Li TH, Dai YC, 2019. Resource diversity of Chinese macrofungi: edible, medicinal and poisonous species. Fungal Diversity, 98: 1-76
Zha LS, Huang SK, Xiao YP, Boonmee S, Eungwanichayapant PD, McKenzie EHC, Kryukov V, Wu XL, Hyde KD, Wen TC, 2018. an evaluation of common Cordyceps (Ascomycetes) species found in Chinese markets. International Journal of Medicinal Mushrooms, 20(12): 1149-1162
Zha LS, Xiao YP, Jeewon R, Zou X, Wang X, Boonmee S, Eungwanichayapant PD, McKenzie EHC, Hyde KD, Wen TC, 2019. Notes on the Medicinal Mushroom Chanhua (Cordyceps cicadae (Miq.) Massee). Chiang Mai Journal of Science, 46(6): 1023-1035
[附中文参考文献]
蔡邦华,1957. 昆虫分类学. 上册. 北京:财政经济出版社.64 代永东,虞泓,曾文波,杨俊媛,何璐,2016. 多基因联合分析棒束孢属Isaria (Ascomycota,Cordycipitaceae)系统发育关系. 菌物学报,35(2): 147-160
李增智,陈祝安,陈以平,2014. 国宝虫草金蝉花. 合肥:合肥工业大学出版社. 276
李增智,Nigel L. Hywel-Jones,栾丰刚,张胜利,孙长胜,陈祝安,李春如,谭悠久,董建飞,2020. 与蝉花有关的虫草菌生物多样性的研究,I. 重要药用真菌蝉花名称的文献考证. 菌物学报,已接受
梁宗琦(主编),2007. 中国真菌志,第32 卷,虫草属. 北京:科学出版社. 77-80
刘爱英,邹晓,谌斌,2011. 虫草属一新种,蝉棒束孢有性型. 中国农业杂志(学术版),4(11): 10-14
刘波,1974. 中国药用真菌. 太原:山西人民出版社. 14-15
刘少华,陆金萍,朱瑞良,戴富明,2005. 一种快速简便的植物病原真菌基因组DNA 提取方法. 植物病理学报,35(4): 362-265
幸兴球,1975. 大蝉草和小蝉草的分类. 微生物学报,15(1):21-26
(本文责编:王敏)